关注我们

扫码关注我们

了解更多信息

首页 > 产品服务 > 基因相互作用

转录因子和启动子相互作用

启动子作为基因转录调控的核心区域,其活性受反式作用因子(转录因子)的精确调控。转录因子通过其DNA结合域与靶基因启动子中的特异性顺式作用元件(cis-acting elements)结合,进而实现对基因表达的抑制或增强。双荧光素酶报告基因系统是鉴定此类转录因子与靶基因启动子顺式元件直接互作的重要研究工具。

针对转录因子与启动子相互作用研究,汉恒生物提供基于 pGL3-Basic 报告载体、pRL-TK 内参载体及转录因子表达质粒的定制化服务。我们将靶基因启动子特定片段克隆至荧光素酶编码序列上游,结合启动子截短或定点突变(MUT)策略,实现对转录因子与靶基因启动子结合及关键调控位点的精准鉴定。

实验原理

将靶基因启动子的特定片段插入 pGL3-Basic 载体中荧光素酶编码序列的上游作为报告基因的启动子,再与转录因子表达质粒、内参质粒 pRL-TK 共转染细胞。裂解后加入底物,通过检测荧光素酶活性判断转录因子是否能与该启动子片段作用:转录因子激活启动子则 F-Luc 表达升高,抑制则降低;pRL-TK 持续表达 R-Luc 校正转染效率与细胞数差异。

转录因子调控启动子活性的双荧光素酶报告系统 报告载体 pGL3-Basic:启动子片段置于 F-Luc 上游;转录因子表达质粒 + pRL-TK 内参共转染 pGL3-Basic 报告载体 启动子片段 F-Luc 转录因子质粒 TF 表达 pRL-TK R-Luc 内参(持续表达) 共转染细胞 启动子 → F-Luc R-Luc(内参) TF 结合 激活 → F-Luc ↑ | 抑制 → F-Luc ↓ | R-Luc 稳定校正 转录因子与启动子片段互作,改变 F-Luc 信号强弱 F-Luc 黄绿光 · 560 nm 信号随调控变化 R-Luc 蓝光 · 465 nm 信号稳定(内参) 相对活性 = F-Luc / R-Luc(R-Luc 校正)
图1:转录因子调控启动子活性,改变 F-Luc 荧光素酶表达;pRL-TK 表达 R-Luc 作内参校正,相对活性变化反映调控方向与强弱

作用机制要点

  • 启动子驱动报告:将靶基因启动子片段克隆至 pGL3-Basic 的 F-Luc 上游,启动子活性直接反映为 F-Luc 发光强度。
  • 转录因子调控:共转染转录因子表达质粒,激活则 F-Luc 升高、抑制则降低,直观读出调控方向。
  • 内参校正:pRL-TK 持续表达 R-Luc,校正转染效率与细胞数差异,使相对活性可比。

系统基于两类发光机制不同的荧光素酶:萤火虫荧光素酶(F-Luc)与海肾荧光素酶(R-Luc),两者底物与发光特性互不干扰,可在同一样本中顺序检测。

定位策略:结合启动子 5' 系列截短或潜在结合位点定点突变,可将转录因子的调控作用精确定位到具体的顺式元件。

两种荧光素酶

萤火虫荧光素酶(F-Luc)

底物 / 辅因子
荧光素、O₂、ATP、Mg²⁺
发光特征
黄绿色光 · 560 nm
系统角色
检测报告基因(启动子活性)

海肾荧光素酶(R-Luc)

底物 / 辅因子
腔肠素、O₂
发光特征
蓝光 · 465 nm
系统角色
内参报告基因(pRL-TK)

同孔顺序检测不仅完全模拟转录因子对启动子的天然调控方式,且以 R-Luc 校正转染效率与细胞状态差异,结果更可靠。

报告载体与内参系统

pGL3-Basic 与 pRL-TK 质粒示意图
pGL3-Basic与pRL-TK质粒图谱

本系统采用 pGL3-Basic 报告载体 + pRL-TK 内参质粒的组合,兼顾"启动子活性读出"与"转染效率校正"两大优势:

  • 自定义启动子研究

    pGL3-Basic 不含启动子,目的启动子片段位于 F-Luc 上游,便于精确研究启动子活性与调控。

  • 内参稳定校正

    pRL-TK 由 TK 启动子持续驱动 R-Luc,与 F-Luc 互不干扰,单孔即可完成校正。

  • 灵活构建兼容

    支持启动子 WT / 5' 截短体 / 结合位点突变体等多种构建,适配位点定位研究。

服务内容

服务说明
启动子活性验证验证转录因子与启动子是否存在相互作用(野生型启动子 + 转录因子过表达 / 敲低)
转录因子与启动子作用位点研究通过启动子分段截短、潜在结合位点定点突变,定位转录因子的精确结合区域
启动子报告质粒构建pGL3-Basic / Promoter 等载体的启动子区段克隆与测序验证
转录因子表达质粒可由客户提供或委托构建;配套过表达 / 干扰方案设计

实验流程

01

实验方案设计

启动子区段选择、截短 / 突变方案与分组确认,制定实验方案。

方案评估
02

报告质粒构建

pGL3-Basic-启动子片段(WT / 截短体 / 突变体)并行构建,测序验证确保插入正确。

WT / 截短 / 突变 并行测序验证
03

共转染

报告质粒 + pRL-TK 内参 + 转录因子表达质粒(或对照)共转染细胞。

三质粒共转对照设置
04

双荧光素酶检测

采用 HB-DLR-100 试剂盒,依次检测 F-Luc / R-Luc 活性,R-Luc 校正转染效率。

HB-DLR-100F / R 双报告
05

数据分析与报告交付

交付

相对活性比值、倍数变化与统计检验,交付原始数据与完整报告。

原始数据完整报告
应用案例

点击下方标签切换客户应用案例。

ESR2 靶向激活 LPAR3 启动子 (骨关节炎) 实验案例

Redox Biology IF = 11.4

Lipoxin A4 ameliorates knee osteoarthritis progression in rats by antagonizing ferroptosis through activation of the ESR2/LPAR3/Nrf2 axis in synovial fibroblast-like synoviocytes
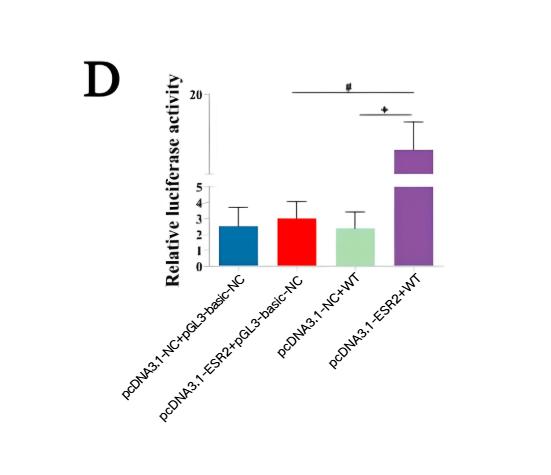
文章Figure 7D:ESR2通过调节LPAR3的表达参与骨关节炎的发病机制
文章Figure 7D:ESR2通过调节LPAR3的表达参与骨关节炎的发病机制。
客户单位中国医科大学附属盛京医院
使用产品pGL3-Basic 启动子报告质粒 + pcDNA3.1 转录因子表达质粒
产品信息构建含 LPAR3 启动子序列的 pGL3-Basic 报告质粒,及转录因子 ESR2 的 pcDNA3.1 过表达质粒
使用方式siRNA-LPAR3转染FLS;LPAR3和ESR2过表达质粒转染FLS。LPAR3启动子和ESR2转录因子进行双荧光结合验证实验。
研究结论:双荧光素酶实验证实(Fig. 7D),过表达转录因子 ESR2 显著升高了 LPAR3 启动子的荧光素酶活性,表明 ESR2 能够直接结合并激活 LPAR3 的启动子转录,进而发挥抗铁死亡和缓解骨关节炎的作用。

SMAD3 靶向激活 ITGB5 启动子 (胃癌) 实验案例

Cancer Letters IF = 9.7

ITGB5 facilitates gastric cancer metastasis by promoting TGFBR2 endosomal recycling
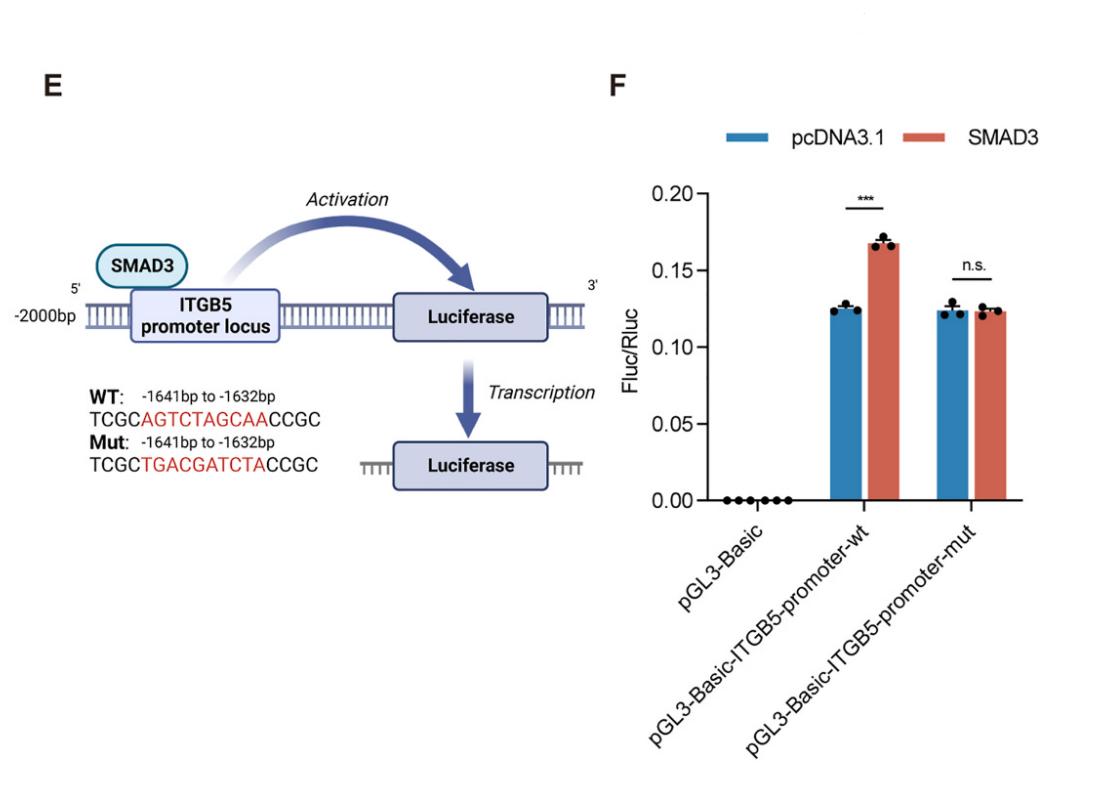
文章 Fig. 7E、F:ITGB5启动子区和萤光素酶报告子的示意图(E)双荧光素酶报告子检测293T细胞ITGB5启动子活性和ITGB5结合位点(F)
客户单位中山大学附属第一医院
使用产品pGL3 启动子报告系统(WT / MUT 突变体)+ pcDNA3.1-SMAD3 表达质粒
产品信息构建含 ITGB5 启动子区段(预测结合位点 -1641 bp~-1632 bp)的野生型与突变型报告质粒,及转录因子 SMAD3 表达质粒
使用方式ITGB5 启动子(野生型和突变型)的报告质粒,转录因子SMAD3过表达pcDNA3.1 质粒共转染到 293T 细胞中,转染 48 小时后进行荧光素酶检测,以量化转录活性。
研究结论:双荧光素酶实验证实,SMAD3 能显著激活野生型 ITGB5 启动子的荧光素酶活性;而在 -1641 bp~-1632 bp 结合位点突变后,该激活作用消失。成功证明了 SMAD3 对 ITGB5 的直接转录激活作用。

HIF-1α 靶向激活 RASSF1C 启动子 (胰腺癌) 实验案例

Cell Death & Disease IF = 9.6

The RASSF1C-HIF-1α Axis Drives Macrophage Lipid Metabolism to Promote Pancreatic Cancer
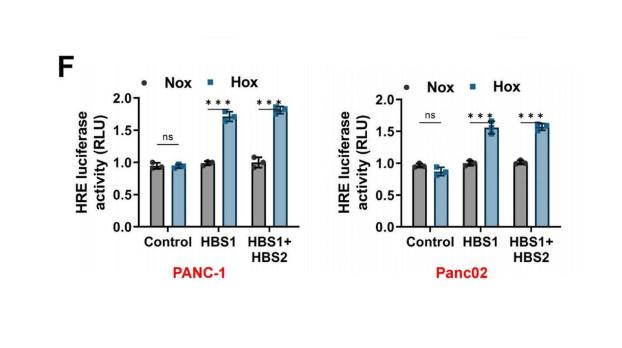
文章 Fig. 4F:萤光素酶报告物测定证明了RASSF1C上HBS1和HBS1+HBS2区域的激活作用Hox下的表达
客户单位武汉大学同仁医院(武汉市第三医院)
使用产品pGL3 启动子报告系统(HBS1 / HBS1+HBS2)+ pcDNA3.1-HIF-1α 表达质粒
产品信息构建含 RASSF1C 启动子缺氧结合位点(HBS1 或 HBS1+HBS2)的 pGL3 荧光素酶报告质粒,及转录因子 HIF-1α 的 pcDNA3.1 过表达质粒
使用方式将 RASSF1C 启动子报告质粒、HIF-1α 表达质粒及 pRL-TK 内参质粒共转染至 PANC-1 和 Panc02 细胞,缺氧(Hox)培养 24 小时后检测双荧光素酶活性。
研究结论:双荧光素酶实验证实(Fig. 4F),在缺氧条件下,转录因子 HIF-1α 显著激活了含有 HBS1 或 HBS1+HBS2 位点的 RASSF1C 启动子活性。成功证明了 HIF-1α 能直接结合并转录激活 RASSF1C 的表达。
常见问题
启动子片段应选取多长?
常规以转录起始位点(TSS)为参照,选取TSS上游约2,000 bp至下游20~200 bp作为候选区域。该范围覆盖多数近端顺式调控元件;若生物信息学预测提示关键结合位点分布于更远端,可按预测位点分布调整片段边界。截短实验则以此全长片段为起点。
启动子截短实验如何设计?
采用5′端系列缺失策略,以固定步长(如每500 bp)从远端向TSS方向逐段截短,构建一组启动子片段报告载体。各截短片段与转录因子共转染后,比较Fluc/Rluc相对活性变化:若某一片段删除后活性显著丧失或明显改变,则该区段可能包含功能性转录因子结合位点或核心启动子元件;在此基础上再对候选位点实施定点突变,以确认直接结合。
pGL3系列骨架如何选择?
pGL3-Basic不含真核启动子与增强子序列,萤火虫荧光素酶活性完全依赖于插入片段自身的启动子功能,是自定义启动子活性验证的首选骨架。pGL3-Promoter在luc+上游携带SV40启动子,适用于增强子或抑制子元件的功能验证,将待测元件克隆至SV40启动子上游或下游后,以SV40基础活性为参照检测调控效应。
转录因子过表达质粒由谁提供?
可由客户提供,或委托汉恒进行转录因子编码序列的过表达质粒构建。无论来源,实验设计中均应设置转录因子空载体对照组,以排除载体骨架或转染本身对启动子活性的非特异性影响。
应选择过表达还是敲低转录因子?
过表达与敲低(siRNA或shRNA)并非互斥,而是从相反方向验证同一调控关系的互补策略。过表达用于检测转录因子对启动子活性的增强或抑制效应;敲低用于确认内源性转录因子水平下该调控关系的生理相关性。若条件允许,双方向结果一致可显著提升结论的稳健性;若仅选择其一,应在结果解释中说明该方向所能支持的推论边界。
报告质粒、内参质粒与转录因子质粒的共转染比例如何确定?
报告质粒与pRL-TK内参质粒的常用质量比范围为10:1至100:1,文献中10:1、50:1与100:1均有报道,最优比例因细胞类型、转染试剂与载体骨架而异。转录因子表达质粒的用量亦需纳入优化。建议在正式实验前以小规模梯度预实验确定三者比例,使Fluc读数处于仪器线性检测范围内,同时Rluc信号足以实现有效归一化。
实验周期如何预估?
常规项目周期约20个工作日,具体以方案评估与质粒构建复杂度为准。若包含截短系列或突变体系列构建,周期相应延长。
效应量达到何种程度可支持结论?
建议每组设置≥3个复孔,并完成至少3次独立生物学重复。统计检验中以Fluc/Rluc归一化后的相对活性进行组间比较,报告Fold Change及显著性水平(P值)。满足预设统计显著性标准的组间差异即可作为支持调控关系成立的依据;同时应在结果中呈现效应量的绝对值,以便审稿人评估其生物学相关性。
想要获取更多产品信息及报价?
汉恒生物每年为1w+客户提供优质服务,项目经验10W+,期待与您的合作
联系我们