昼夜节律是生物体为适应地球自转而演化出的内源性生理振荡,周期约为24小时,由多层转录-翻译反馈环路(TTFLs)驱动和维持。该环路的核心组分包括Bmal1、Clock、Per1-3、Cry1/2、Rorα/β/γ以及Nr1d1/2。作为核心转录因子,BMAL1与靶基因结合的时机与机制直接决定节律的精确性,但其分子基础尚未阐明。液-液相分离(LLPS)是由蛋白质或核酸间多价相互作用驱动的无膜细胞器自发组装过程,通常形成液滴状结构。富含低复杂度序列的内在无序区域(IDRs)可通过柔性构象提供多价结合位点,进而介导相分离的发生。研究表明,LLPS能够动态响应细胞周期、环境应激及转录需求等多种细胞事件。然而其在哺乳动物昼夜节律中的分子基础仍属未知。
2026年3月25日,四川大学华西口腔医学院周陈晨、袁泉、樊怡团队在Signal Transduction and Targeted Therapy(IF=81.2)发表了题为"BMAL1 regulates circadian rhythms via phase separation-mediated transcriptional hub formation"的研究论文。该研究首次证实核心时钟因子BMAL1是一种相分离蛋白,其通过N端IDR形成动态的生物分子凝聚体,作为转录枢纽选择性招募CLOCK、p300、MED1,并受 E-box DNA 促进,从而驱动昼夜节律性转录。功能上,缺失IDR的BMAL1突变体(ΔN90)无法在Bmal1敲除细胞中恢复节律性转录,也不能在SCN特异性Bmal1敲除小鼠中恢复行为学节律。这一发现建立了相分离与哺乳动物昼夜节律调控之间的因果联系。
汉恒生物有幸为作者提供了以下体内基因调控工具:
下面,我们一起来了解具体的研究内容:
BMAL1形成随昼夜节律动态变化的生理性凝聚体
研究团队首先检测了不同时间点(ZT:Zeitgeber time,ZT0定义为光照开启时刻)下BMAL1的表达与分布。虽然肝脏中BMAL1总蛋白水平呈现典型的昼夜振荡(峰值约ZT20,谷值ZT8-12),但免疫荧光染色显示内源性BMAL1在核内形成点状凝聚体具有独特的时间模式,且与总蛋白波动相对独立。在肝脏中,凝聚体斑点丰度在ZT2左右达到峰值(接近BMAL1 DNA结合峰值ZT6);而生物钟中枢视交叉上核(SCN)中,峰值出现在ZT18至ZT6之间。
通过PONDR网站预测,BMAL1含有三个主要的IDRs。为验证这些结构特征是否驱动活细胞中的凝聚体形成,研究者在U2OS细胞中过表达eGFP-BMAL1,经地塞米松(DEX)同步化后发现,野生型BMAL1仅在ZT22至ZT6之间组装成液滴,于ZT2达到峰值。单细胞延时显微成像显示这些凝聚体随时间推移逐渐消散。FRAP(荧光漂白恢复技术)实验显示约40%的荧光恢复,表明存在共存的动态交换相和相对稳定相;在活细胞中,这些液滴可发生分裂与融合;1.5% 1,6-己二醇(1,6-HD)短期(2 min)处理即可溶解BMAL1液滴。Multi-SIM超分辨成像进一步证实了ZT2时间点内源性BMAL1在U2OS细胞中的点状分布。这些观察结果表明,BMAL1液滴具有典型的液相特性。
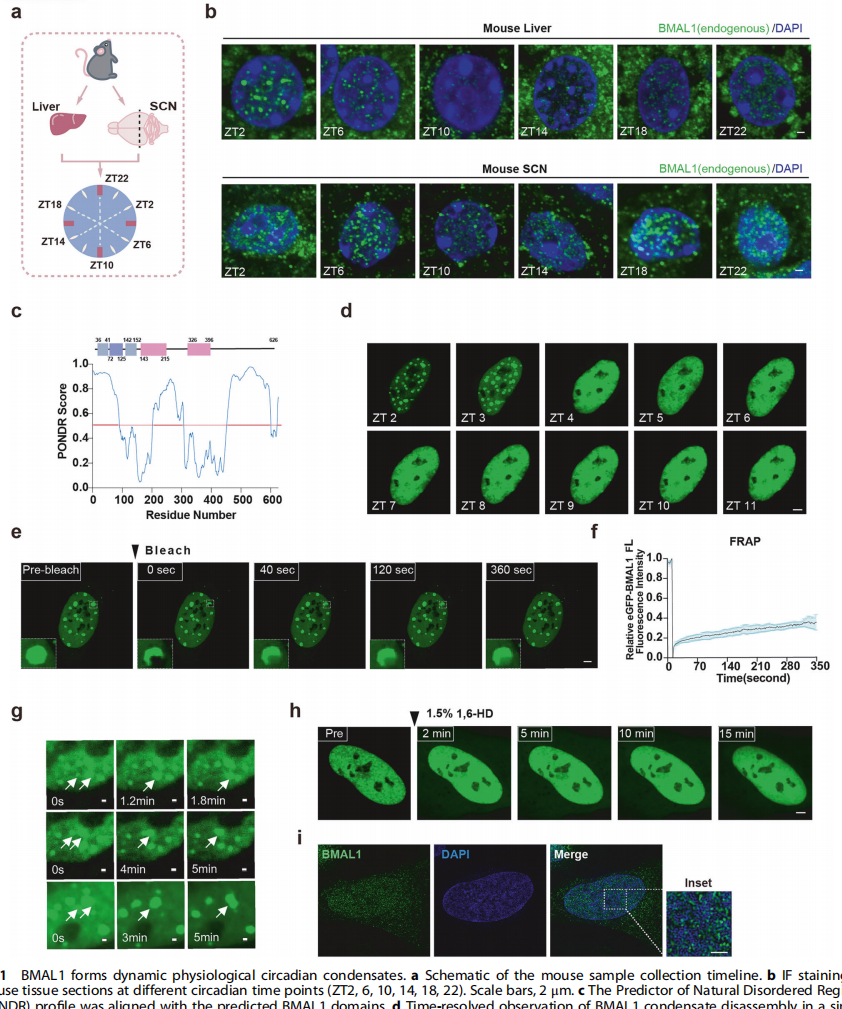
图1 BMAL1可形成动态的生理节律凝聚体
磷酸化与IDR扰动调控BMAL1凝聚体的形成
为排除细胞环境的影响,研究者利用纯化的eGFP-BMAL1蛋白进行体外相分离实验。结果显示,BMAL1在150 mM NaCl条件下发生LLPS,形成均一的液滴样凝聚体,且液滴大小随蛋白浓度增加而增大。当NaCl浓度高于800 mM时,体系转变为不溶性絮状聚集体。
为鉴定BMAL1 LLPS的序列决定因素,研究者对PONDR预测到的三个IDR分别构建了截短突变体。缺失202-307和452-600 的IDR突变体仍能发生相分离,但相分离行为显著改变,形成了体积更小、高度动态的核内液滴;而ΔN90突变体(缺失N端90个氨基酸)则完全呈弥散分布,无可见液滴。进一步利用光遗传学工具(Cry2-mCherry-BMAL1-N90)发现,N90片段在蓝光照射下可诱导聚集现象。同时,鉴于磷酸化会破坏BMAL1-CLOCK复合物的稳定性并调控IDR的相行为,研究者用λ蛋白磷酸酶(λ-PPase)处理体外制备的BMAL1液滴,发现液滴转变为不规则的不溶性组装体;但Western blot未显示明显的迁移率变化,表明与凝聚体形成相关的磷酸化事件可能在化学计量上比较有限,难以通过常规电泳技术清晰分离。随后构建的BMAL1-N90片段模拟磷酸化(STD)和去磷酸化(STA)突变体显示,磷酸化模拟突变抑制凝聚体形成,而去磷酸化模拟突变虽能形成凝聚体,但其形态结构不规则。综上所述,N端90个氨基酸是BMAL1相分离的必要条件,其磷酸化状态调控凝聚体的组装及液滴形态。
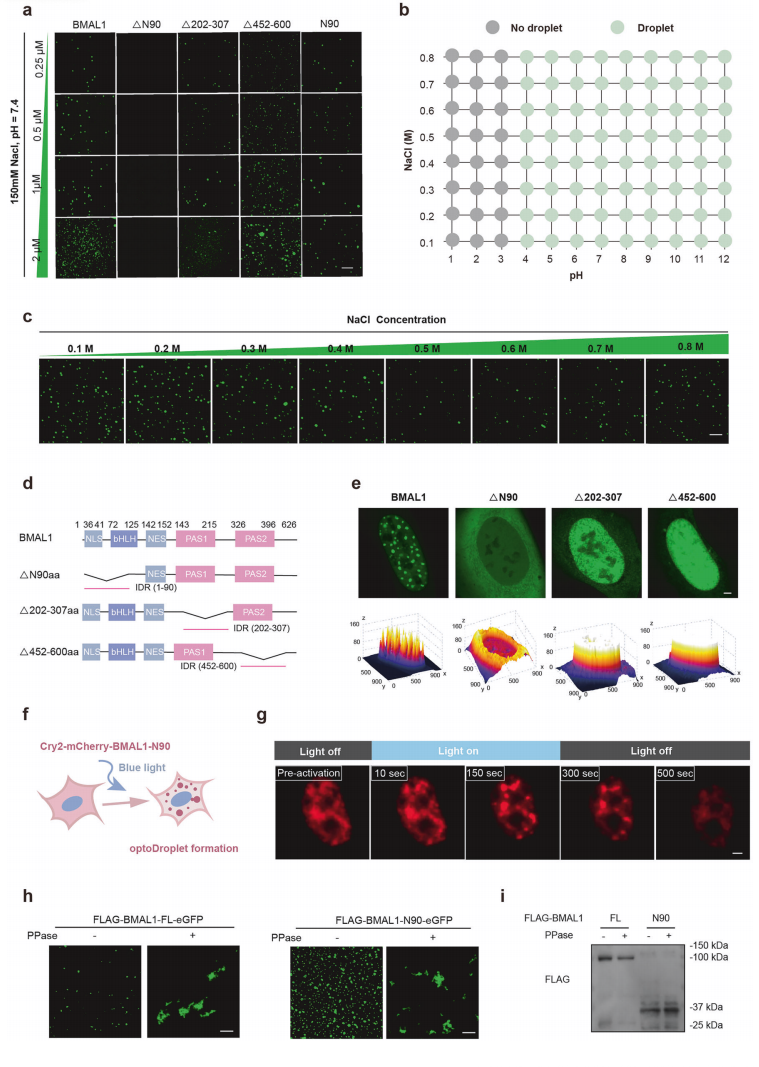
图2 磷酸化与IDR扰动可调控BMAL1凝聚体的形成
振荡的BMAL1可选择性募集转录机器及E-box元件
在二元相分离模型(即单一相分离生物分子与溶剂的体系)中,稀相中的表观饱和浓度(Csat)是恒定的,且与总丰度无关。相比之下,多组分凝聚体涉及异型相互作用,不存在固定的Csat。研究者观察到,随着BMAL1表达量增加,核质浓度并非维持在单一Csat,而是增加了约10倍;浓相和稀相中的浓度比(分配系数)显著降低,转移自由能(ΔGtr)负值减小,表明BMAL1介导的斑点是多组分凝聚体。
由于BMAL1可作为转录因子发挥作用,首先采用免疫荧光检测了其与转录机器的共定位情况。结果显示,BMAL1与其异二聚体伴侣蛋白CLOCK、MED1以及组蛋白乙酰转移酶p300显著共定位;而BRD4、RNAPII-S5p、RNAPII-S2p则环绕在凝聚体周围。值得注意的是,相分离缺陷型BMAL1-ΔN90突变体不能与CLOCK、MED1和p300共定位。体外实验进一步证实,CLOCK和MED1蛋白均有效分布于BMAL1凝聚体中。此外,Cy3标记的E-box DNA寡核苷酸以剂量依赖方式促进BMAL1及BMAL1-N90的相分离。这表明BMAL1凝聚体作为多分子组装体,能够选择性富集转录机器和靶标DNA元件。
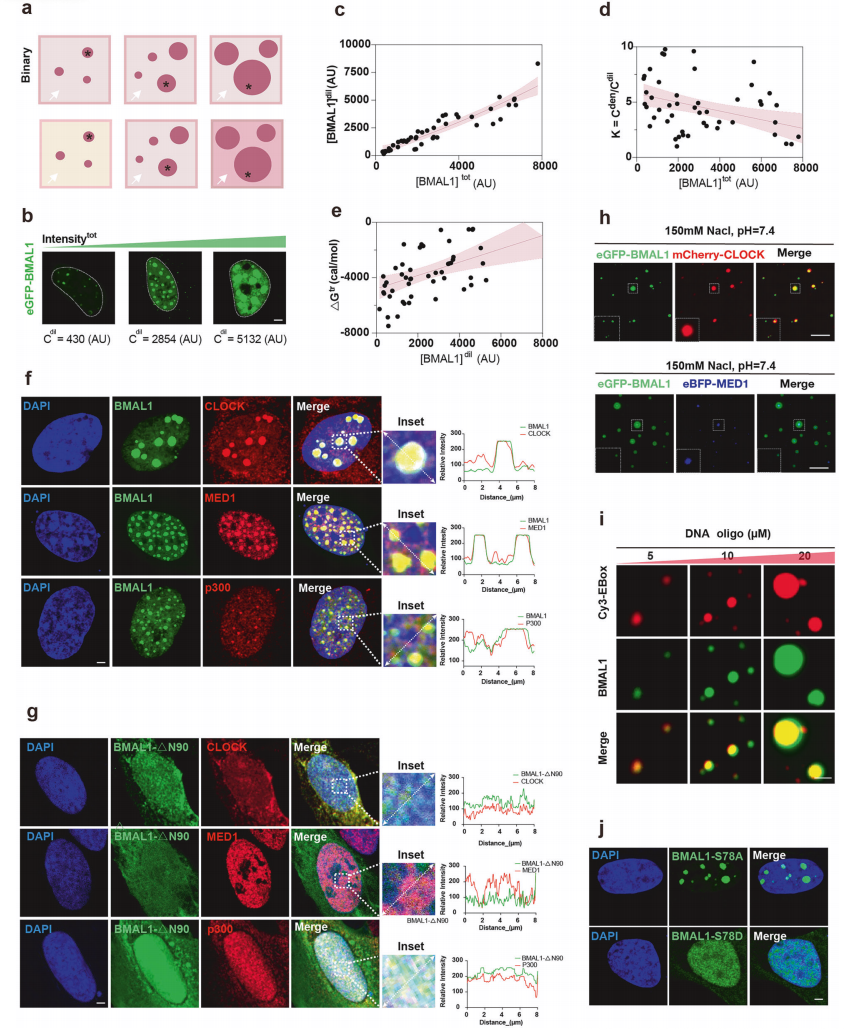
图3 振荡的BMAL1可选择性地招募转录机器及E-box元件
IDR介导的BMAL1凝聚体调控昼夜节律基因转录
为探究BMAL1依赖性转录和染色质景观,研究者在Bmal1敲除(KO)的U2OS细胞中,以及用WT BMAL1或凝聚体缺陷突变体(ΔN90)稳定回补的KO细胞中,进行了批量RNA-seq和H3K27ac ChIP-seq分析。转录组水平上,Bmal1-ΔN90组与KO组相似,表现为经典时钟基因表达下调。与WT细胞相比,Bmal1-KO和Bmal1-ΔN90细胞在核心昼夜节律钟基因(如NR1D2、RORB)、转录相关基因(如ERCC6)以及关键转录调控因子(如SOX3、SOX7、SOX11、TNF)位点上的H3K27ac富集显著降低。全基因组时序H3K27ac占据状态分析显示,WT细胞中H3K27ac在启动子区域富集,并在转录起始位点(TSS)呈现显著的昼夜振荡(ZT10为谷值,在主观夜间升高);而Bmal1-KO和ΔN90细胞在ZT2表现出特异性结合能力减弱,周期其余阶段内的结合占有率保持相对恒定。尽管三组间相位分布未发生显著偏移(峰值集中在ZT20-ZT4),且节律峰的比例无显著差异,但节律峰调控的生物学功能却呈现显著差异。WT细胞中,节律性H3K27ac峰相关基因富集于核体相关组分中,参与丝氨酸/苏氨酸激酶活性、信号转导、代谢调控及基因表达正调控等过程;而Bmal1-KO和ΔN90组高度一致地富集于细胞质相关组分中,并与DNA复制、DNA修复和有丝分裂等基本细胞维持过程密切相关。综上结果表明,IDR介导的BMAL1凝聚体调控昼夜节律基因转录。
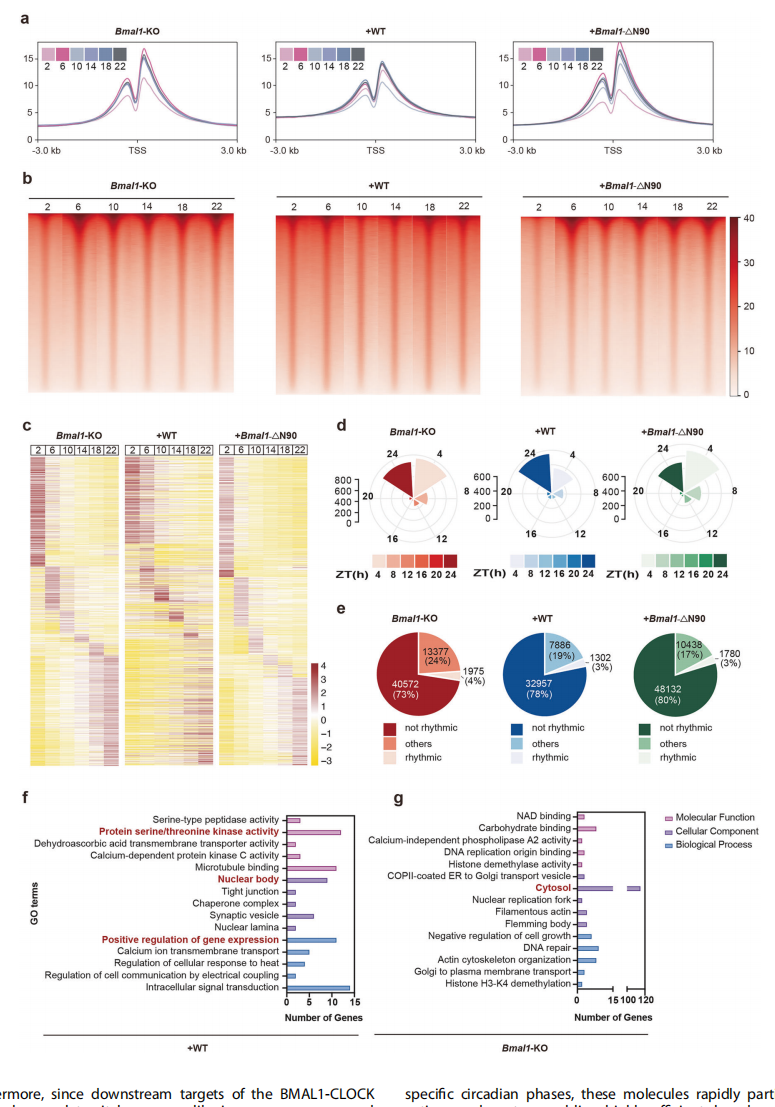
图4 IDR介导的BMAL1凝聚体调控昼夜节律基因转录
BMAL1凝聚体可调控细胞内的昼夜节律
为进一步验证凝聚体与活性转录区域的时空关联,研究者通过免疫荧光检测了U2OS细胞中H3K27ac的节律性。为监测BMAL1经典靶基因(NR1D1、NR1D2、PER2、PER3)的时序表达,对Bmal1-KO细胞、回补WT BMAL1或ΔN90突变体的KO细胞,每4小时采集mRNA样本,持续24小时。结果显示,这四个E-box调控基因在对照细胞中呈节律性表达,但在Bmal1-KO细胞中则表现出稳定的低表达水平且无振荡现象;WT BMAL1回补恢复了它们的节律性表达,而ΔN90突变体则与KO细胞表现一致,未能挽救这些振荡。此外,作者还利用5-乙炔基尿苷(EU)标记监测新生RNA合成,发现对照组新生转录本水平呈现显著的昼夜节律振荡(ZT12-ZT16达到峰值),而Bmal1-KO细胞中该节律显著减弱。重要的是,WT BMAL1重表达能基本恢复转录振荡,而相分离缺陷型突变体Bmal1-ΔN90则未能挽救节律表型,表现为持续低水平且无节律的转录活性。这些结果证实,BMAL1凝聚体形成能力与其驱动节律性转录的功能紧密相连。
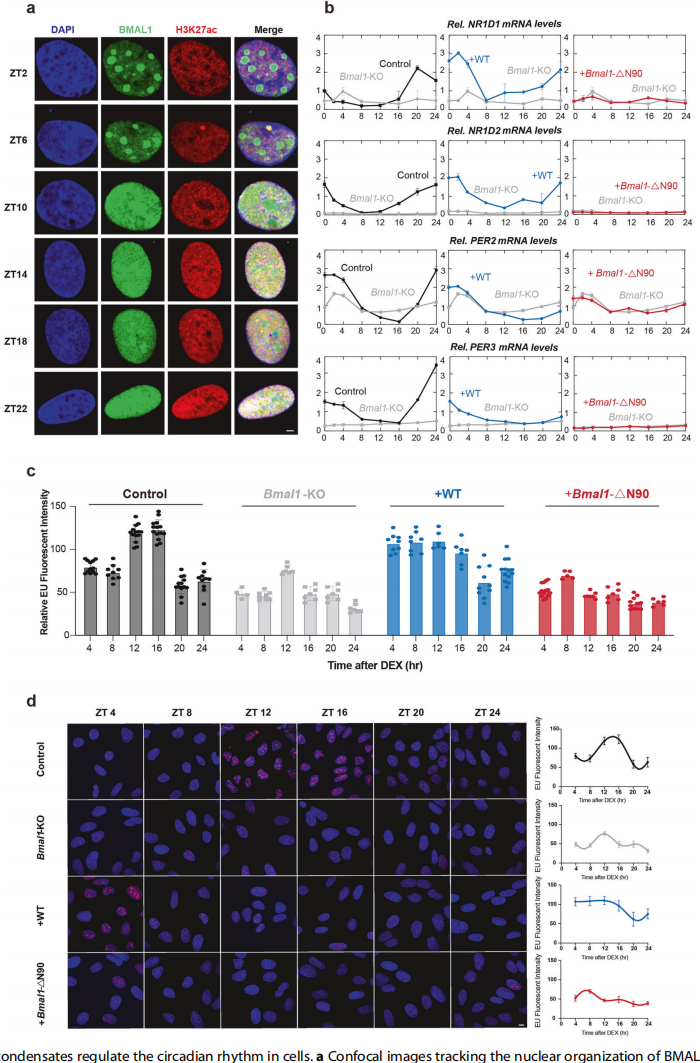
图5 BMAL1凝聚体可调控细胞内的昼夜节律
BMAL1凝聚体可调控小鼠的昼夜节律
为验证相分离在体功能,研究者通过向Bmal1flox/flox小鼠SCN中注射AAV9-CMV-Cre-T2A-mCherry实现组织特异性Bmal1-KO,三周后再通过类似病毒递送方式分别回补BMAL1-WT或ΔN90突变体。作者采用跑轮实验评估昼夜节律行为,小鼠先在12h光照/12h黑暗(LD)循环下适应14天,随后转入持续黑暗(DD)条件下两周。对照组小鼠表现出清晰、高度节律性的活动模式,周期约23.6小时;SCN特异性敲除Bmal1小鼠则导致周期延长(>24h)、节律振幅降低、整体活动水平降低。FFT(Fast Fourier Transform,快速傅里叶变换)分析显示Bmal1-KO小鼠的昼夜节律功率显著降低,出现多个小峰,提示节律紊乱。WT BMAL1重表达几乎完全恢复了正常行为节律,其频谱模式与对照组高度相似;而ΔN90突变体的表达则未能挽救这些缺陷。这些在体实验结果证明,BMAL1的相分离能力是维持正常昼夜节律行为所必需的。
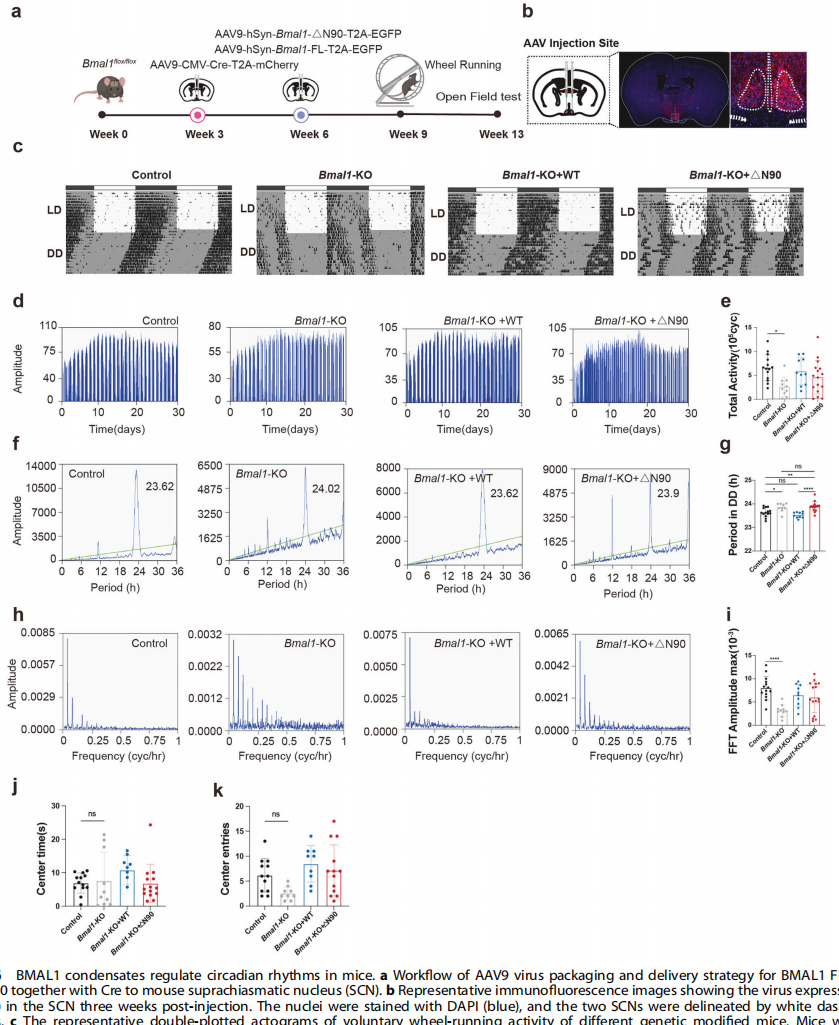
图6 BMAL1凝聚体可调控小鼠的昼夜节律
本研究首次揭示了核心时钟蛋白BMAL1通过IDR介导的相分离形成动态转录凝聚体,从而调控昼夜节律的全新机制。BMAL1凝聚体作为转录枢纽,选择性招募CLOCK、p300和MED1等转录机器,并受E-box DNA促进;其N端IDR的磷酸化状态则精细调控凝聚体的组装与解聚。破坏相分离能力的BMAL1-ΔN90突变体无法挽救Bmal1缺失细胞的节律性转录,也无法恢复SCN特异性Bmal1敲除小鼠的昼夜行为节律。这一机制也为理解转录因子结合与转录输出之间的时间延迟提供了相分离视角的解释。鉴于BMAL1-CLOCK下游靶标还参与免疫应答和细胞增殖等关键过程,靶向调控BMAL1相分离动态有望为昼夜节律相关疾病(如睡眠障碍、代谢综合征)提供新的治疗策略。
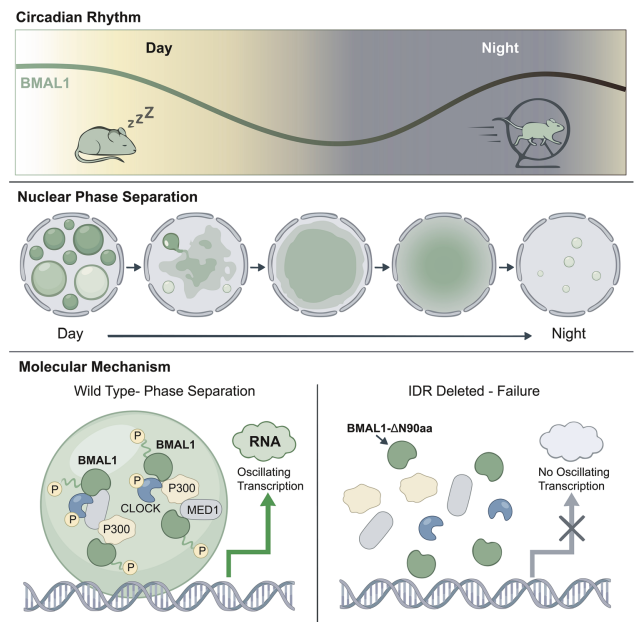
图7 BMAL1相分离调控昼夜节律钟示意图




 8802