2026年5月,华西口腔医院段沛沛团队在《Bone Research》(IF=20.1)期刊发表了题为“SphK1/mitophagy axis in cementocytes drives orthodontic root resorption via mitochondrial transfer to osteoclasts”的研究论文。该研究鉴定出机械信号转导驱动破骨细胞活化的一种新的信号通路:牙骨质细胞中的鞘氨醇激酶1(SphK1)通过线粒体自噬介导的线粒体转移,将过重的正畸力转化为促进破骨细胞生成的信号。
值得注意的是,研究中使用了汉恒生物提供的SphK1靶向siRNA,为体外验证SphK1在力学诱导线粒体自噬中的关键作用提供了技术支撑。
正畸诱导的炎症性牙根吸收(OIIRR)是正畸治疗中的一种常见并发症,由过重机械力引发;既往研究表明,破骨细胞是介导牙根吸收的主要效应细胞,而机械信号转导与破骨细胞激活的内在通讯机制尚不明确。本研究发现一条全新的信号轴:牙骨质细胞中的SphK1通过线粒体自噬介导的线粒体转移,将过重的正畸力转化为促进破骨细胞生成的信号。体内实验中,过重机械力可诱发OIIRR,并上调牙骨质细胞内线粒体自噬标志物。体外实验中,过重机械力刺激能够在IDG-CM6牙骨质细胞中触发SphK1依赖的线粒体自噬,具体表现为线粒体自噬小体生成增多、线粒体-溶酶体共定位增加,以及PINK1/PARKIN信号通路活化。药物抑制或基因敲低SphK1均可抑制该线粒体自噬。受机械力刺激的牙骨质细胞条件培养基(CM)可促进破骨细胞分化与糖酵解代谢;抑制SphK1后该效应消失,而线粒体自噬激动剂可回补该表型。至关重要的是,研究证实过重机械力会促进牙骨质细胞线粒体向破骨前体细胞转移,该过程依赖线粒体自噬。转移的线粒体可作为代谢补给,提升破骨细胞的能量代谢水平与骨吸收活性。本研究揭示了SphK1-线粒体自噬-线粒体转移信号轴是牙骨质细胞-破骨细胞间通讯的核心机制,提示SphK1可作为预防OIIRR的潜在靶点。
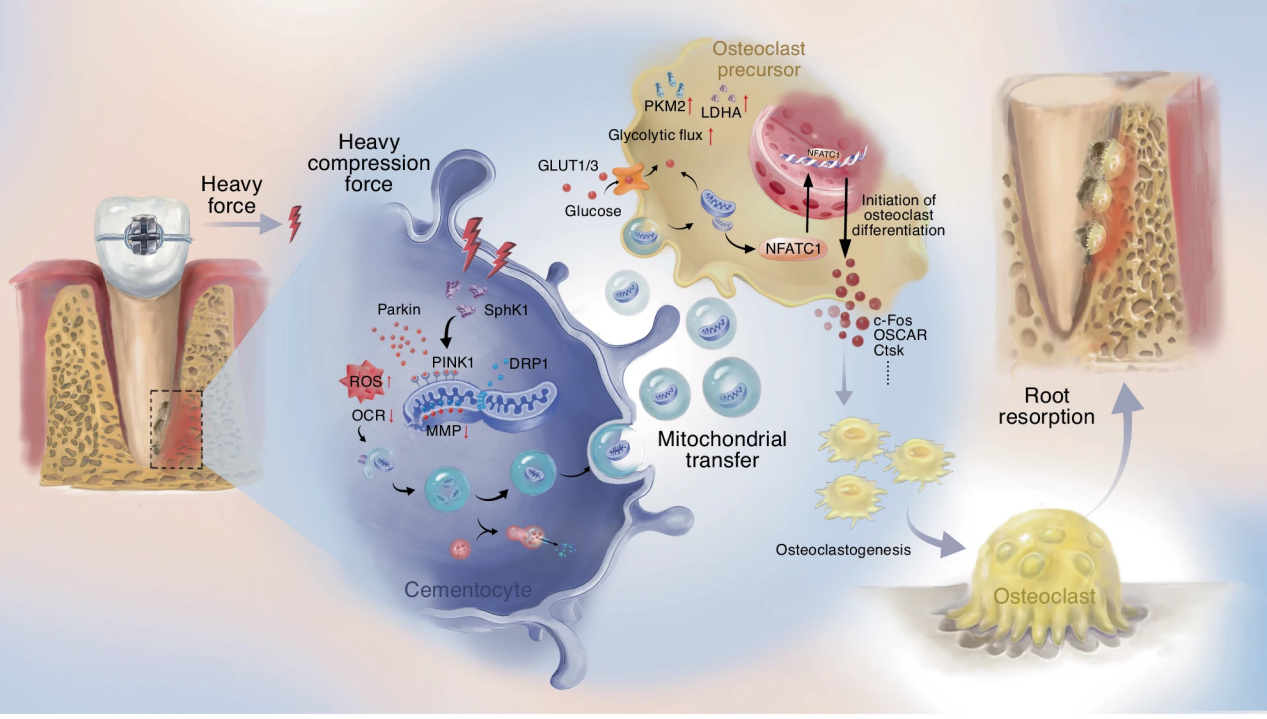
图1. SphK1/线粒体自噬轴驱动正畸牙根吸收的机制示意图
下面,我们一起来了解具体的研究内容:
过重正畸力诱导OIIRR并与牙骨质细胞线粒体自噬增强相关
为探究过重正畸力对正畸牙移动(OTM)过程中根牙骨质的影响,作者首先分析了牙根的组织学形态。结果显示,与对照组(0g)和轻力组(25g)相比,过重正畸力组(100g)的牙根受压侧出现更多的吸收陷窝,牙周纤维排列紊乱,破骨细胞(抗酒石酸酸性磷酸酶TRAP阳性细胞)数量增加,破骨细胞标志核因子活化T细胞胞质1(NFATc1)表达增强(图2a-c, g)。
鉴于线粒体自噬已被证实参与调节牙周稳态和矿化组织吸收,作者进一步检测了牙骨质细胞中线粒体自噬标志物DRP1和PARKIN的表达。结果显示,与对照组和轻力组相比,过重正畸力组DRP1和PARKIN阳性细胞增加,牙骨质细胞中自噬/线粒体自噬特异性标志物LC3B的表达也显著升高(图2d-f, h-i)。这些结果表明,过重正畸力诱导OIIRR,并与牙骨质细胞中线粒体自噬增强相关,提示牙骨质细胞线粒体自噬与过重正畸力诱导的OIIRR密切相关。
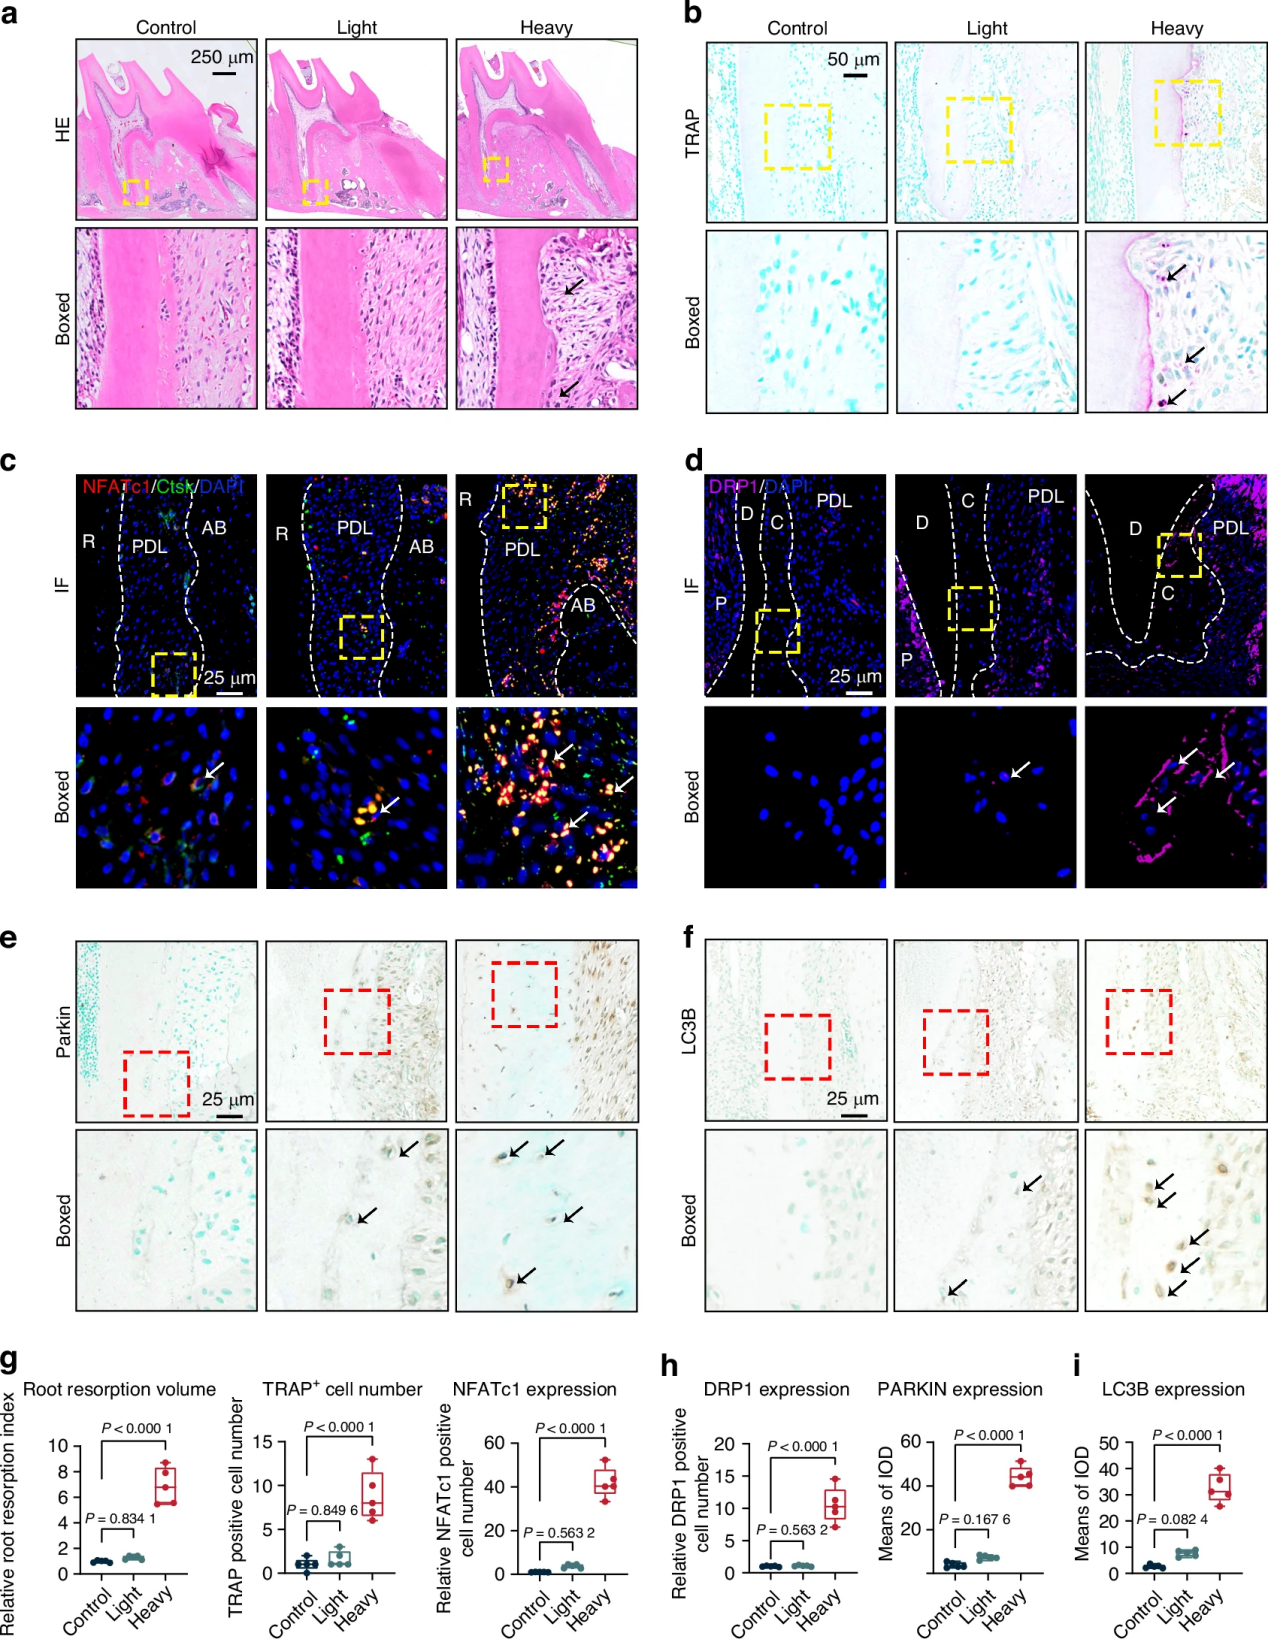
图2. 过重正畸力诱导OIIRR并与牙骨质细胞线粒体自噬增强相关
过重机械力增强IDG-CM6细胞中的线粒体自噬
为在体外评估过重机械力是否会激活牙骨质细胞的线粒体自噬,作者对遭受过重机械力(3.0 g/cm2)处理6小时的IDG-CM6细胞进行了RNA测序(RNA-seq)。散点图和热图分析显示,对照组与过重机械力组之间的基因表达模式存在显著差异,聚类分析鉴定出过重机械力组中线粒体自噬相关基因(包括Pink1、Prkn、Fis1和Phb2)显著上调(图3a-b)。KEGG通路分析表明线粒体自噬和自噬相关信号通路显著富集,其中线粒体自噬富集最为显著(图3c)。
鉴于线粒体功能障碍是触发线粒体自噬的标志,作者检测了IDG-CM6细胞中的细胞内的活性氧(ROS)、线粒体ROS(mtROS)和线粒体膜电位(MMP)。过重机械力触发了显著的氧化应激(ROS和mtROS增加),并导致线粒体功能障碍,具体表现为MMP降低以及基础呼吸、ATP生成和呼吸能力等参数中的氧消耗率(OCR)下降(图3d-f)。此外,线粒体自噬关键标志物PINK1、PARKIN、DRP1和FIS1的表达水平也显著上调(图3g)。透射电镜显示,与对照组和轻力组相比,过重机械力组IDG-CM6细胞中线粒体自噬体数量显著增加(图3h)。这些结果共同表明,过重机械力促进牙骨质细胞中的线粒体自噬。
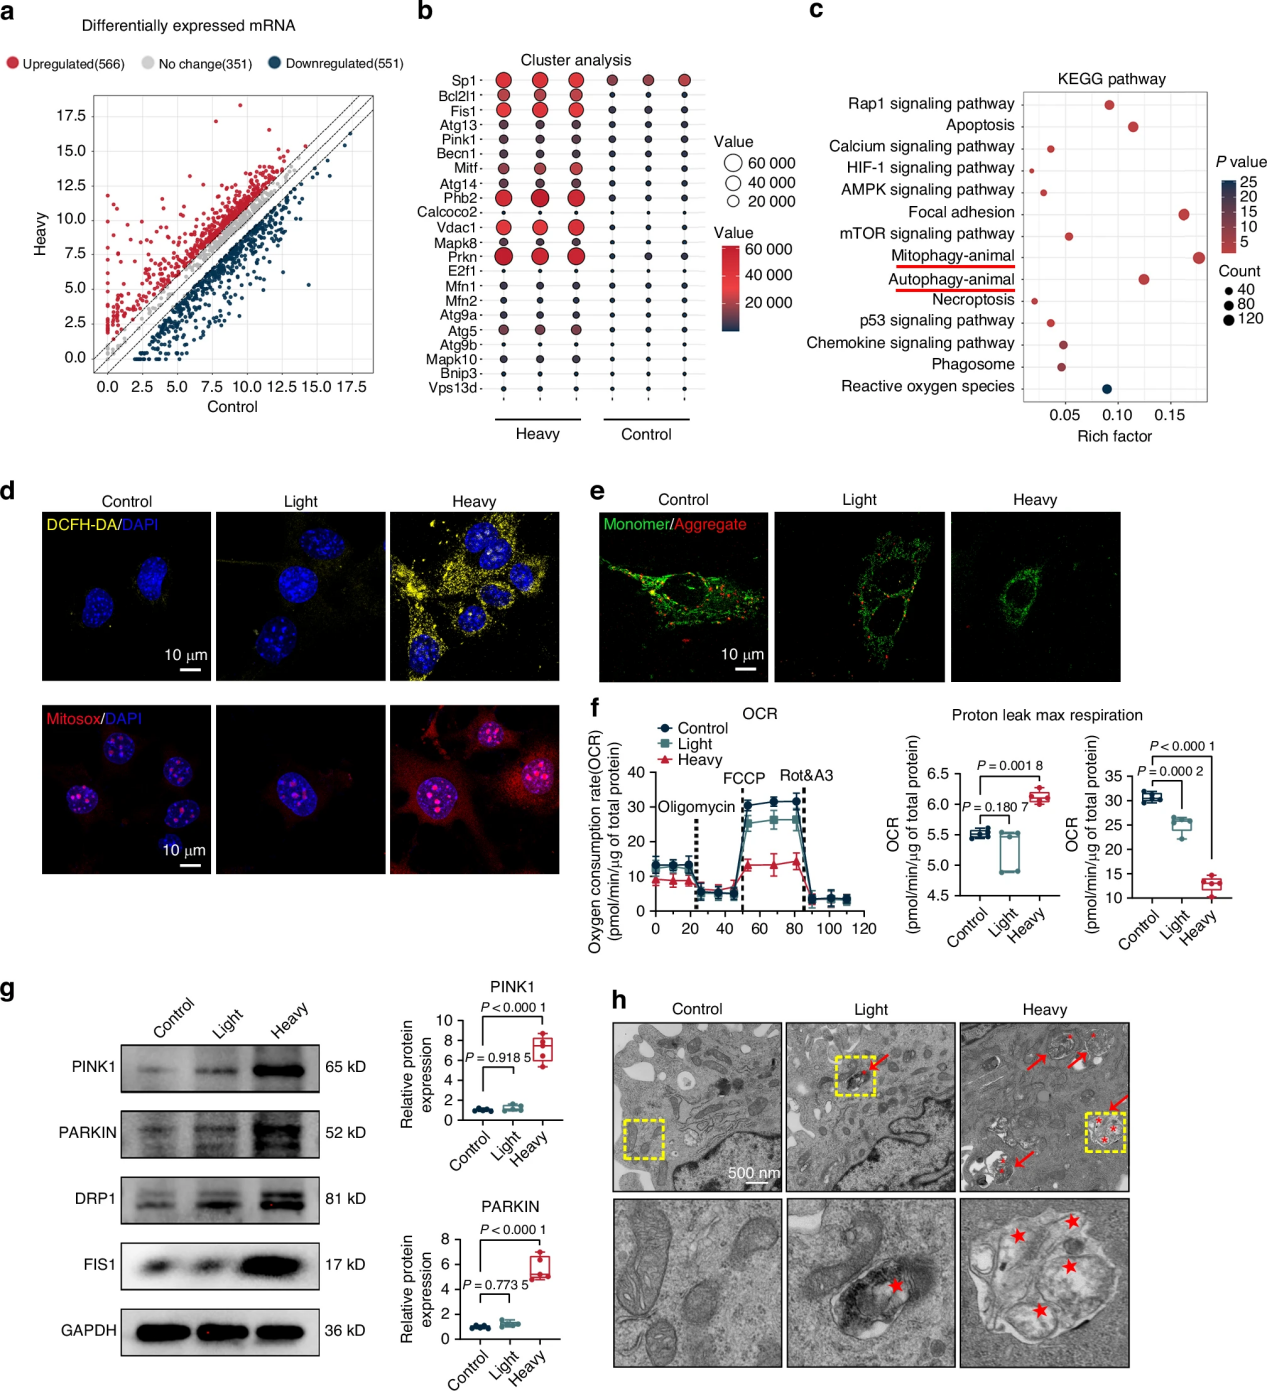
图3. 过重机械力增强IDG-CM6细胞中的线粒体自噬
SphK1在过重机械力下促进IDG-CM6细胞的线粒体自噬
先前的研究已确定SphK1是牙骨质细胞响应机械力刺激的关键力学感受器和转导器。在明确过重机械力可诱导线粒体自噬后,作者将SphK1锁定为关键研究对象。作者观察到,SphK1抑制剂PF-543以剂量依赖性方式抑制IDG-CM6细胞中机械力诱导的PINK1、PARKIN、DRP1和FIS1的上调(图4a-b),表明SphK1对机械力诱导的牙骨质细胞线粒体自噬至关重要。
为进一步证实这一机制,作者检测了ROS、mtROS和MMP水平,并进行了免疫荧光共定位研究。结果显示,在过重机械力下,PF-543以剂量依赖性方式诱导细胞内ROS和mtROS产生,降低JC-1(MMP检测探针)信号强度,并减少PINK1、PARKIN、DRP1和FIS1与LAMP1的共定位(图4c-e)。透射电镜TEM分析也显示,PF-543在过重机械力下显著增加线粒体肿胀和嵴断裂(图4f)。
为直接评估SphK1在力诱导线粒体自噬中的参与,作者使用siRNA敲低IDG-CM6细胞中SphK1的表达,发现过重机械力诱导的PINK1、PARKIN、DRP1和FIS1显著上调被SphK1敲低部分逆转。以上结果表明SphK1促进牙骨质细胞中过重机械力诱导的线粒体自噬。
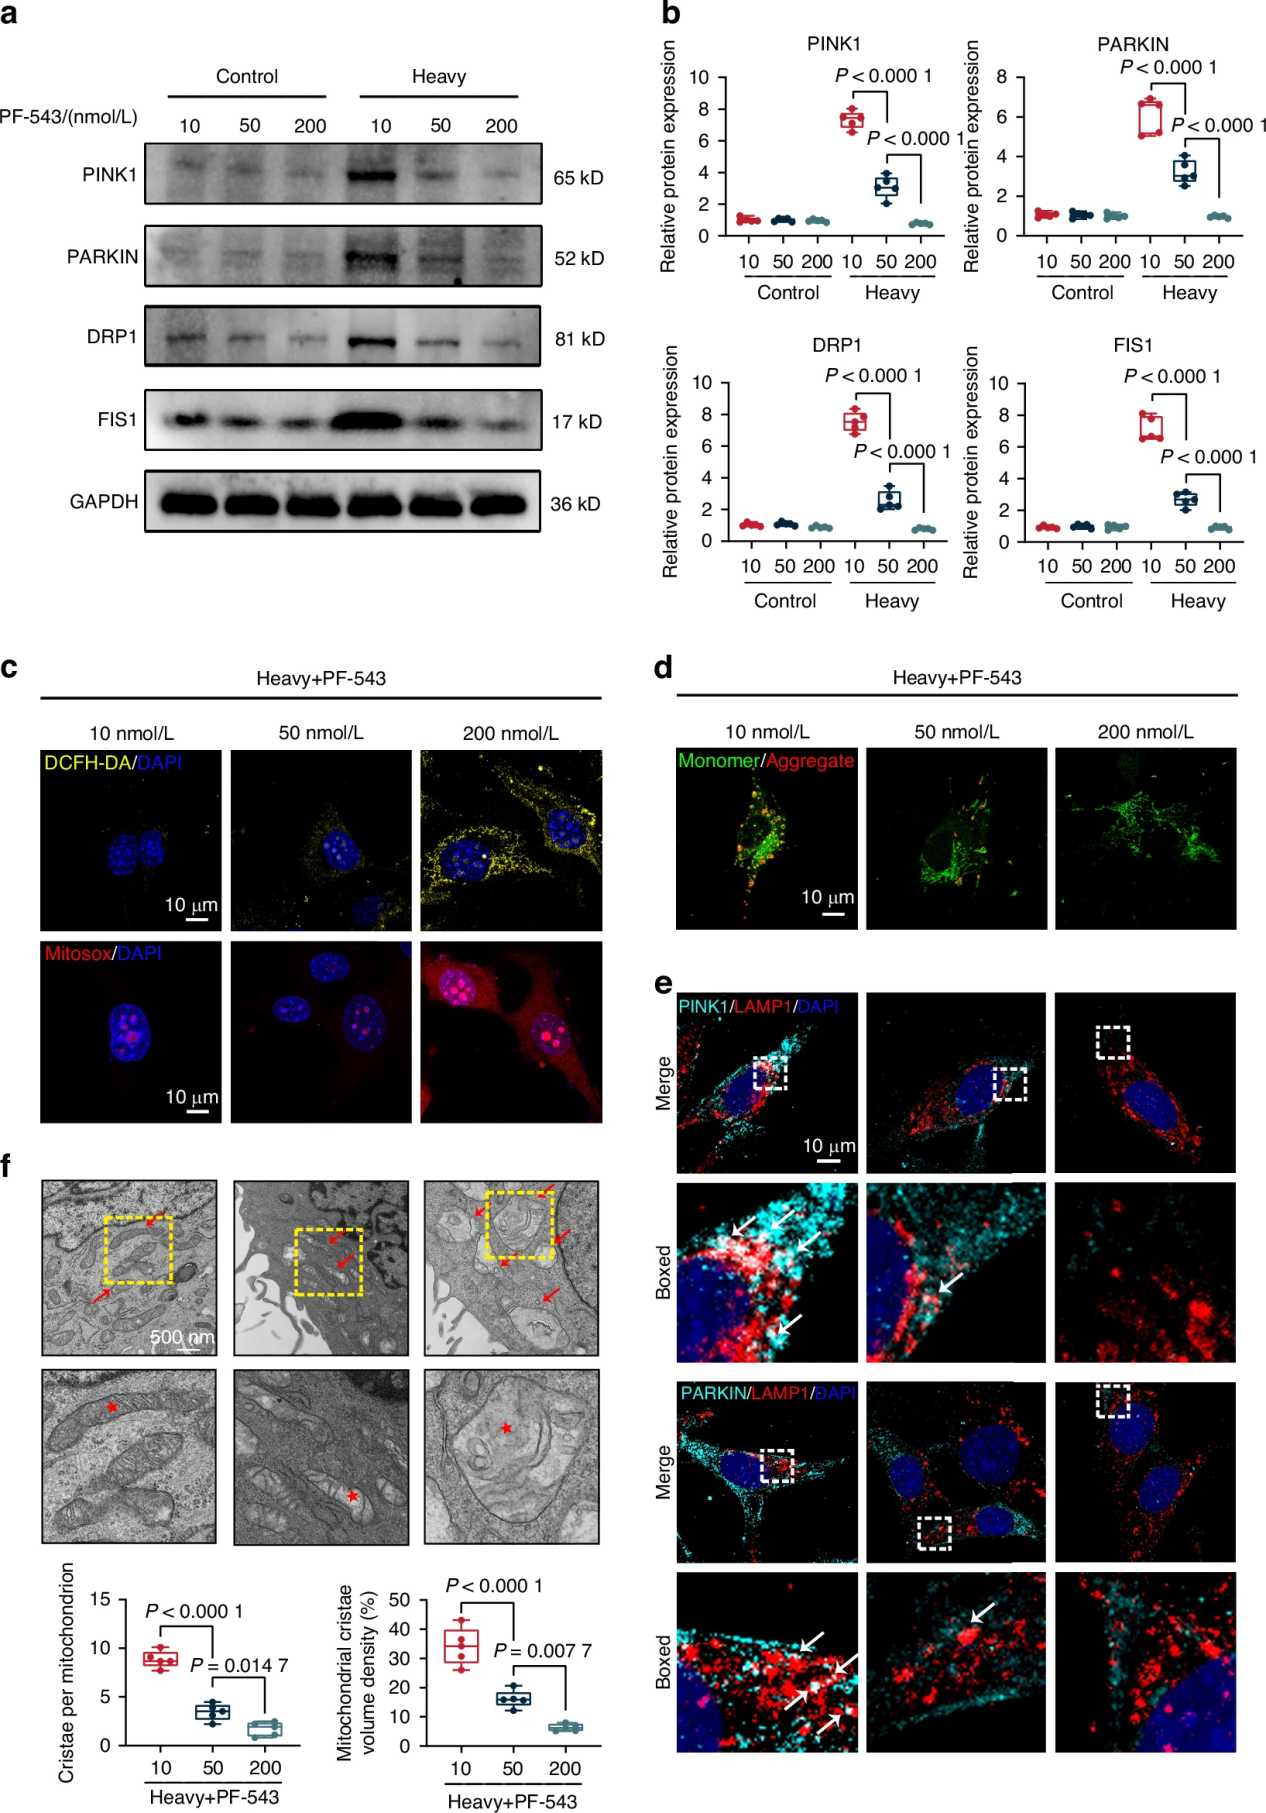
图4. SphK1在过重机械力下促进IDG-CM6细胞的线粒体自噬
SphK1介导的线粒体自噬调控破骨细胞生成和糖酵解代谢
先前的研究数据显示线粒体自噬与破骨细胞诱导的OIIRR密切相关,为此研究团队采用重力负荷下的IDG-CM6细胞的条件培养基(CM)作为共培养介质,与骨髓来源巨噬细胞(BMMs)共同培养,以探究牙骨质细胞内的线粒体自噬如何调控破骨细胞功能。使用PF-543处理重力负荷下的IDG-CM6细胞后,结果显示破骨细胞生成、吸收凹陷以及破骨细胞特异性标志物NFATc1的核转位均呈剂量依赖性显著减少(图5a),其他破骨细胞特异性标志物(c-Fos、Ctsk、OSCAR)的表达也呈剂量依赖性降低(图5b, d)。
鉴于破骨细胞分化和吸收活性涉及向糖酵解的代谢转变,作者推测IDG-CM6细胞中的SphK1可能调节破骨细胞中的糖酵解。siRNA转染IDG-CM6细胞48小时后,分别收集重力负荷细胞和对照细胞CM培养破骨细胞,结果显示,重力负荷细胞CM培养的破骨细胞胞外酸化率(ECAR)显著降低,反映其糖酵解和糖酵解能力下降(图5c)。
为进一步评估SphK1介导的线粒体自噬是否调控破骨细胞生成和糖酵解代谢,作者使用线粒体自噬激动剂Olaparib处理IDG-CM6细胞。结果显示,si-SphK1转染的IDG-CM6细胞CM引起的c-Fos、NFATc1、Ctsk和OSCAR表达显著降低被Olaparib部分挽救,表明破骨细胞生成恢复(图5a)。破骨细胞糖酵解水平及糖酵解相关酶(GLUT1、GLUT3、LDHA和PKM2)的表达水平也呈现与破骨细胞标志物表达相似的趋势(图5b)。这些结果表明,SphK1介导的线粒体自噬同时调控破骨细胞生成和破骨细胞糖酵解代谢。
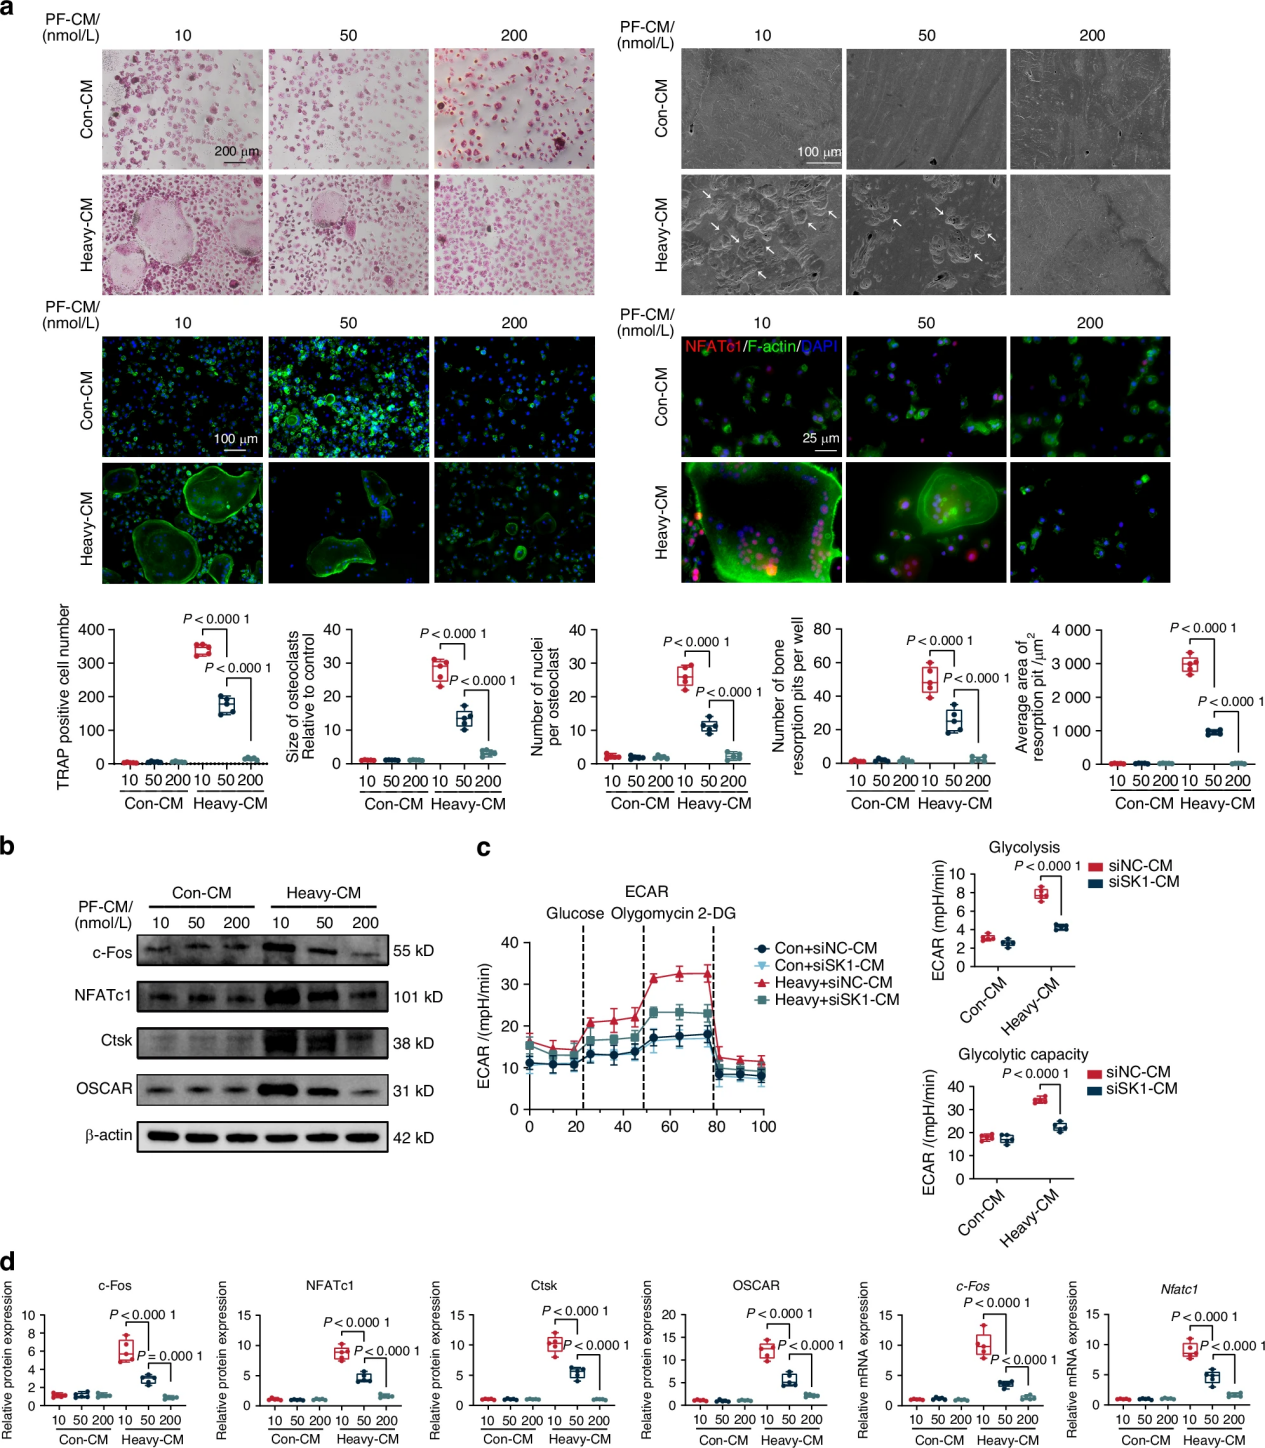
图5. SphK1介导的线粒体自噬调控破骨细胞生成和糖酵解代谢
SphK1抑制减弱牙骨质细胞线粒体自噬并抑制体内OIIRR和破骨细胞糖酵解代谢
为探究SphK1在体内牙周细胞中调控OIIRR和牙骨质细胞线粒体自噬的作用,作者在正畸负荷大鼠模型中给药PF-543分别处理7天和14天。结果显示,PF-543干预后牙根吸收陷窝显著减少,牙周纤维排列一致(图6c-d)。PF-543组PARKIN和DRP1表达均显著下降,表明正畸力诱导的牙骨质细胞线粒体自噬被抑制(图6e-f, i)。此外,破骨细胞中糖酵解相关酶(GLUT1、LDHA)表达减少,破骨细胞数量也随之下降(图6g-h, j)。表明SphK1抑制不仅减弱了牙骨质细胞线粒体自噬,还能抑制OIIRR进展和破骨细胞糖酵解代谢。
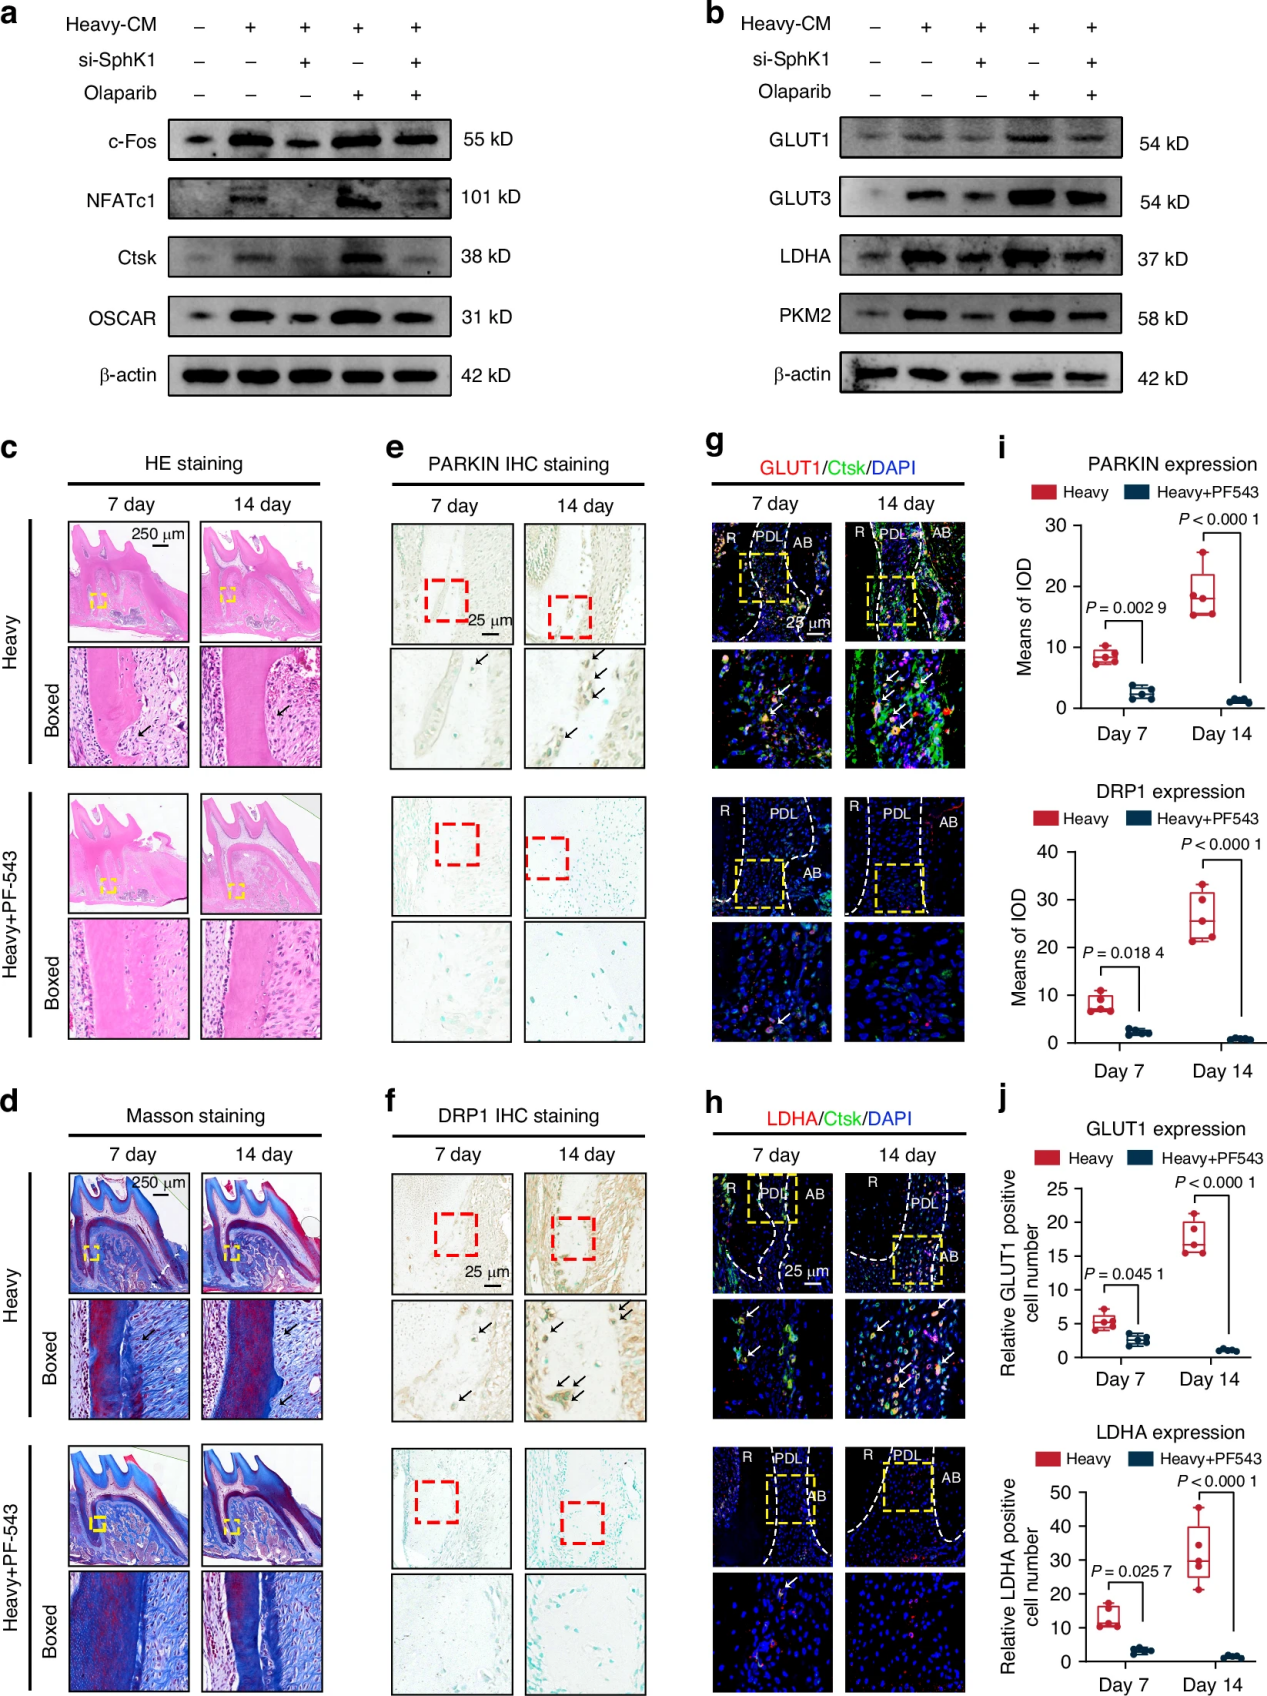
图6. SphK1抑制减弱牙骨质细胞线粒体自噬并抑制体内OIIRR和破骨细胞糖酵解
过重机械力诱导的线粒体自噬通过线粒体转移驱动破骨细胞生成
既往研究表明,成骨细胞作为供体细胞,通过向受体细胞(包括破骨细胞和癌细胞)转移线粒体来调控骨转移。此外,线粒体自噬已被证实会诱导线粒体转移。基于此,作者假设与成骨细胞功能相似的牙骨质细胞响应过重机械力发生线粒体自噬,促进线粒体向BMMs转移以促进破骨细胞生成。
为验证这一假设,作者首先使用线粒体自噬抑制剂Mdivi-1抑制IDG-CM6细胞的线粒体自噬,随后使用该细胞的CM培养BMMs。结果显示,过重机械力能够显著增强线粒体从IDG-CM6细胞向BMMs的转移,而该效应被Mdivi-1以剂量依赖性方式部分减弱(图7a)。为进一步阐明线粒体自噬诱导的线粒体转移在破骨细胞生成中的作用,作者使用IDG-CM6细胞的CM进行体外破骨细胞生成实验。过重机械力导致破骨细胞形成、F-actin 环和吸收陷窝增加,而经Mdivi-1处理后,以上效应均以剂量依赖性方式被显著逆转(图7b)。一致地,破骨细胞特异性标志物(c-Fos、NFATc1、Ctsk、OSCAR)的表达在过重机械力组中升高,但在Mdivi-1处理组中以剂量依赖性方式降低(图7c),ECAR结果也显示糖酵解代谢被同步抑制(图7d)。这些发现共同表明,过重机械力诱导的牙骨质细胞线粒体自噬通过线粒体转移增强破骨细胞生成及其糖酵解代谢。
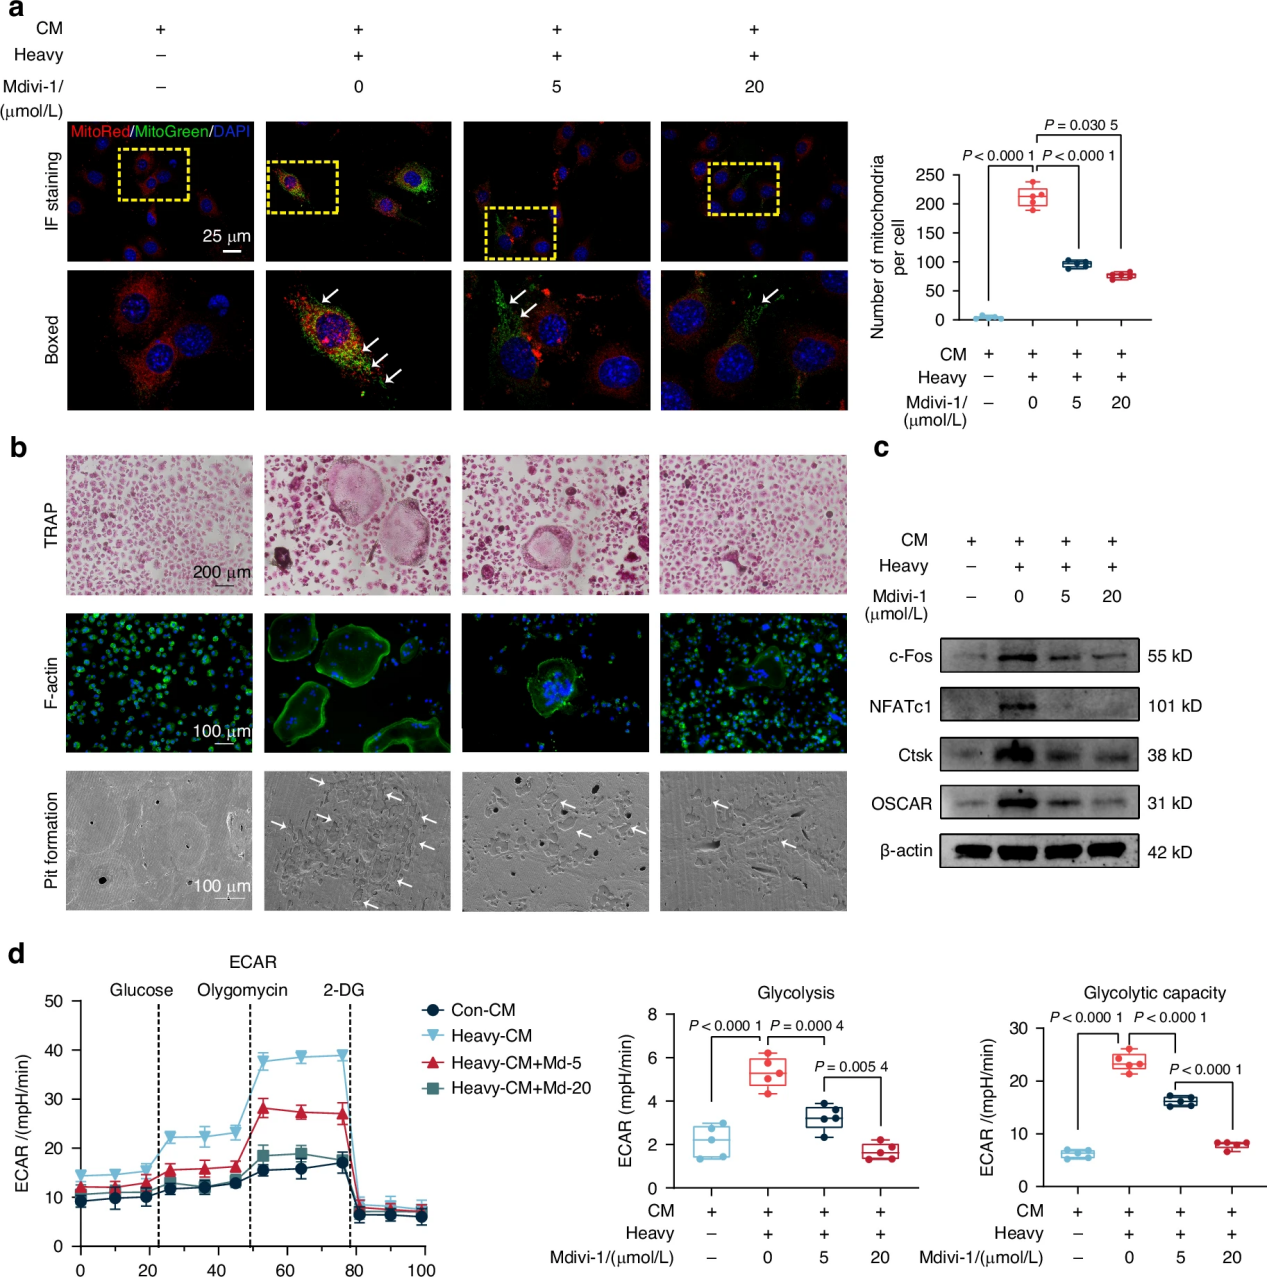
图7. 过重机械力诱导的线粒体自噬通过线粒体转移驱动破骨细胞生成
本研究首次揭示了SphK1-线粒体自噬-线粒体转移信号轴是牙骨质细胞-破骨细胞间通讯的核心机制。过重正畸力激活牙骨质细胞中的SphK1,SphK1通过促进PINK1/PARKIN依赖性线粒体自噬,诱导线粒体从牙骨质细胞向破骨前体细胞转移,这些外源性线粒体作为“代谢补给”,增强破骨细胞的糖酵解代谢,从而促进破骨细胞分化和骨吸收活性,最终驱动OIIRR。该研究结果表明,如果能在牙周局部对SphK1或线粒体转移过程进行精准调控,有望在不影响正畸牙移动效率的前提下,降低OIIRR的发生风险,为这一正畸临床中常见且难以完全规避的并发症提供了新的防治思路。




 8888