2026年6月8日,北京大学基础医学院刘建团队在《Nature Communications》(IF=18.1)期刊在线发表题为“Anisodine hydrobromide targets Matk and prevents delayed rtPA thrombolysis-induced vasogenic cerebral edema in ischemic stroke”的研究论文。该研究围绕延迟溶栓后的血脑屏障损伤展开,发现小分子药物氢溴酸樟柳碱(anisodine hydrobromide,Ani)能够稳定脑微血管内皮细胞中的巨核细胞相关酪氨酸激酶(Matk)蛋白,抑制原癌基因酪氨酸蛋白激酶(Src)激活,并同时减少细胞间和跨细胞两条血管渗漏通路,从而改善小鼠生存、神经功能和脑水肿。
值得注意的是,文章中使用了汉恒生物脑血管内皮靶向的血清型AAV-BI30,并结合内皮细胞特异性启动子Tie1,构建了用于体内基因功能验证的Matk过表达和敲低腺相关病毒。其中,AAV2/BI30-Tie1-miR30-shMatk病毒用于敲低Matk基因,AAV2/BI30-Tie1-Matk用于过表达Matk基因,AAV-BI30血清型与Tie1启动子的组合旨在提高脑血管内皮细胞的表达特异性。
缺血性卒中是最常见的脑血管疾病,重组组织型纤溶酶原激活剂(rtPA)静脉溶栓是其急性期标准疗法,指南推荐在症状发作后4.5小时内给药。然而,临床实践中延迟rtPA治疗十分常见,这会加剧血脑屏障破坏和血管源性脑水肿,并增加死亡率。目前尚无针对延迟溶栓诱导的血管源性脑水肿的药理学治疗方法。因此,亟需开发能够稳定血脑屏障、减轻溶栓后微血管通透性增加的辅助治疗策略。延迟rtPA溶栓一方面会破坏ZO-1、Occludin和VE-cadherin等细胞连接蛋白,扩大内皮细胞间隙,导致旁细胞渗漏;另一方面会激活Src-Caveolin-1信号,增加跨内皮囊泡运输,导致跨细胞渗漏。本研究通过小鼠卒中模型、脑微血管实时渗漏、电镜、蛋白质组学、人蛋白芯片以及HCMEC/D3细胞功能实验,提出“延迟rtPA促进Matk降解-Src持续激活-两类屏障渗漏同步增加”的机制。小分子药物Ani进入内皮细胞后可直接结合Matk,减少其泛素化修饰和蛋白酶体降解,使Src恢复抑制状态,最终维护血脑屏障完整性。
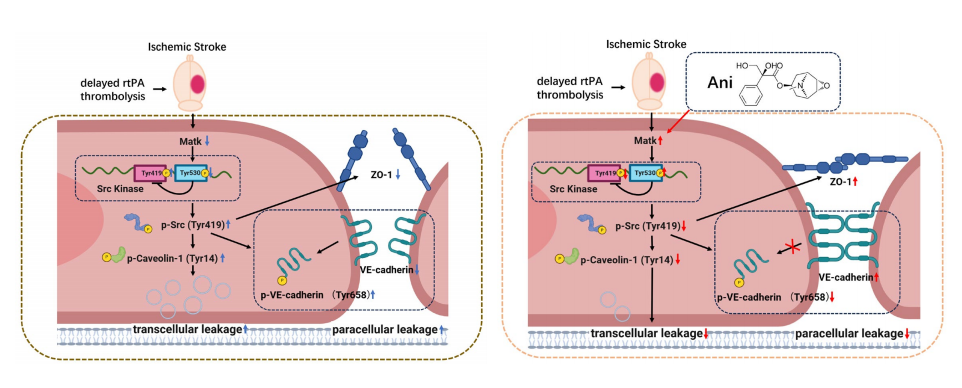
图1:Ani靶向Matk并预防缺血性卒中延迟rtPA溶栓诱导的血管源性脑水肿
下面,我们一起来了解具体的研究内容:
1. Ani改善延迟rtPA溶栓后缺血性卒中小鼠的生存率并减轻血管源性脑水肿
为评价Ani能否改善延迟rtPA溶栓后的预后,首先需明确其最佳给药时点和剂量。为此,作者设定了rtPA后1、2、4小时三个干预时点,并分别给予0.6、1.2和2.4 mg/kg的Ani,Ani的化学结构及实验流程如图所示(图2A-B)。与血栓+rtPA组相比,rtPA后1小时给予低、中剂量Ani以及2小时给予中、高剂量Ani均能显著提高小鼠7天生存率(图2C);在神经功能评估方面,rtPA后1小时或2小时给予高剂量Ani均可改善神经功能评价量表(NES)评分,而rtPA后1、2、4小时给予高剂量Ani均可改善改良神经功能缺损评分(mNSS)(图2D-E)。综合比较可知,高剂量Ani在多个给药时点下均能改善神经功能评分,提示其具有更广泛的保护时间窗。这些结果说明,Ani对延迟溶栓后的死亡和神经功能损伤具有保护作用,其中高剂量在不同给药时间点下均能获得稳定的神经功能改善。
在确认生存率和神经功能获益后,作者进一步探究这些改善是否伴随脑灌注、微血管外渗和脑水肿改变。结果显示,所有rtPA及Ani处理组在溶栓后24小时的脑灌注恢复程度相近(图2F-G),说明Ani的有利效应并非源于增强rtPA的血流再通。相反,Evans blue外渗在多个中、高剂量组中下降,而脑含水量仅在rtPA后1或2小时给予高剂量Ani时才显著降低(图2H-J),表明Ani的核心作用在于减轻再灌注后的微血管渗漏和血管源性脑水肿。综合生存率、神经功能评分和屏障完整性三个指标,rtPA后2小时给予2.4 mg/kg Ani的综合效果最佳,因此被选定用于后续机制实验。
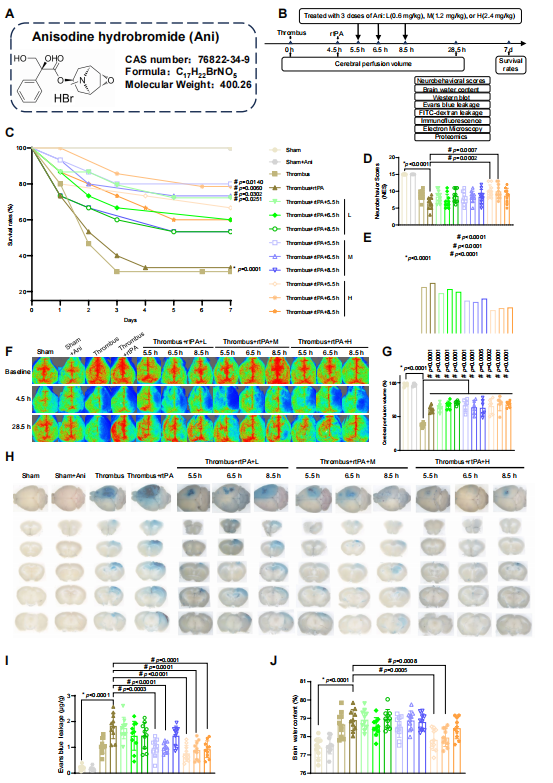
图2:Ani提高rtPA溶栓缺血性卒中小鼠的生存率,并减轻神经功能缺损和血管源性脑水肿
2. Ani减轻rtPA溶栓诱导的缺血性卒中小鼠脑微血管渗漏
血管源性脑水肿的直接病理基础在于血脑屏障通透性升高,而血浆成分既能经内皮细胞间隙沿旁细胞途径渗漏,也能通过内皮囊泡经跨细胞途径运输。为明确Ani对脑微血管屏障功能的影响,并区分其调控的渗漏途径,作者在rtPA后24小时注射FITC-dextran,通过薄颅窗动态记录脑静脉及周围间质荧光。结果显示,与血栓+rtPA组相比,Ani处理组显著降低了间质/静脉荧光比值(图3A-B),提示Ani能有效缓解延迟溶栓后的脑微血管通透性升高。
随后,作者进一步分析Ani对旁细胞屏障结构的调控作用。延迟rtPA导致紧密连接相关蛋白ZO-1、JAM-1和Occludin表达下降,并造成Occludin沿血管壁的连续分布变得断裂;Ani处理后上述异常得到恢复,而Claudin-5未见明显改变(图3C-D)。在黏附连接方面,rtPA进一步降低VE-cadherin和α-catenin水平,但对β-catenin影响不明显;Ani可恢复前两者表达,并改善VE-cadherin沿血管壁的连续分布(图3E-F)。这些结果表明,Ani并非普遍上调所有连接蛋白,而是有针对性地修复被延迟溶栓破坏的紧密连接和黏附连接,从而限制旁细胞渗漏。
除旁细胞途径外,作者还探究了Ani对跨细胞运输途径的影响。结果显示,Ani 显著降低了延迟 rtPA 溶栓诱导的 p-Caveolin-1(Tyr14)和 p-Src(Tyr419)上调,而不影响总蛋白水平(图3G-H),这提示Ani可能通过阻断Src/Caveolin-1介导的囊泡运输。透射电镜进一步观察到,血栓+rtPA组出现内皮连接间隙增宽以及胞质囊泡数量增加;而Ani处理能够缩小连接间隙并减少囊泡数量(图3I-K)。
因此,Ani并非仅修复单一屏障结构,而是同步增强旁细胞连接稳定性与跨细胞运输过程,从多个层面降低延迟rtPA溶栓后的脑微血管渗漏,为其缓解血管源性脑水肿提供了结构与分子依据。
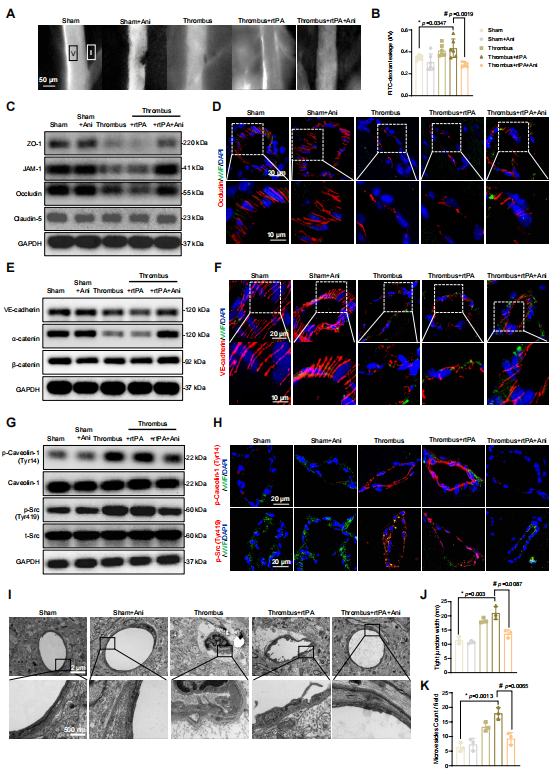
图3:Ani抑制缺血性卒中小鼠rtPA溶栓诱导的脑微血管渗漏
3. 蛋白质组学与HuProt人蛋白芯片联合筛选确定Matk为Ani潜在靶点
确认Ani能够改善延迟rtPA诱导的血脑屏障损伤后,作者进一步探索其发挥保护作用的分子基础。首先,对Sham、血栓+rtPA和血栓+rtPA+Ani三组小鼠缺血侧皮层进行DIA蛋白质组学分析,筛选受到rtPA影响且可被Ani逆转的差异蛋白。结果显示,共105种蛋白在血栓+rtPA组中下调,并在经Ani处理后重新上调(图4A),其中40种蛋白富集于“小分子结合”功能类别(图4B);此外,在rtPA后升高、经Ani处理后下降的120种蛋白中,小分子结合功能显著富集(图4C)。
为直接鉴定靶点,作者合成了Ani-biotin探针(图4D),并利用覆盖约2万种全长人蛋白的HuProt芯片筛选Ani潜在结合蛋白。芯片筛选共检测出729种Ani结合蛋白,其中239种具有小分子结合功能(图4E)。随后,作者将HuProt筛选结果与蛋白质组学得到的40种候选蛋白进行交叉分析,最终获得Matk、Dido1、Psmc3、Glrx2和Cuta五个候选蛋白(图4F)。进一步比较候选蛋白结合信号及分子对接结果后发现,Matk在HuProt芯片中表现出最高的相对荧光信号,并且在五种候选蛋白的反向分子对接分析中获得较优结合评分(图4G-I)。基于多组学筛选和结合能力分析,作者将Matk确定为Ani后续直接作用机制研究的重点候选靶点。
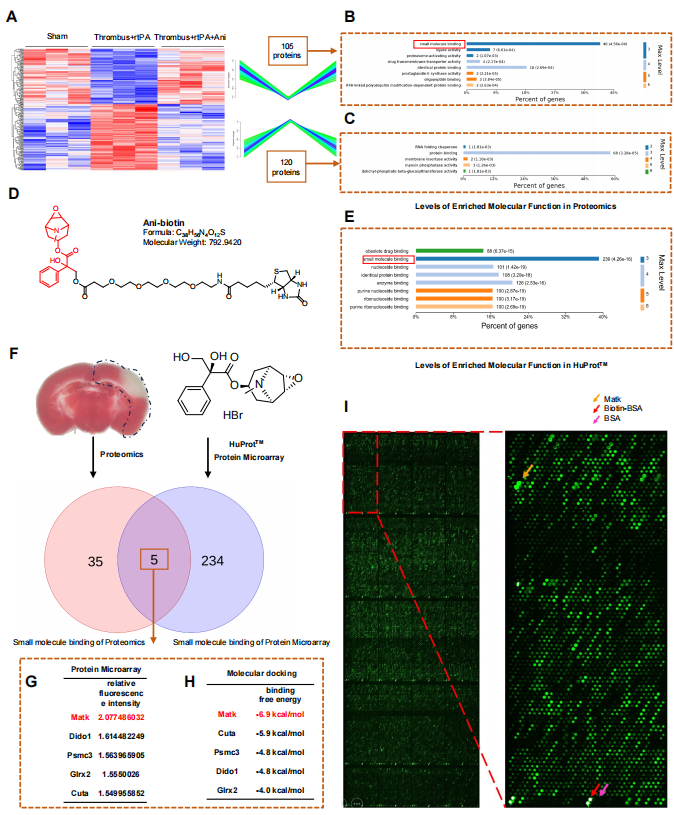
图4:蛋白质组学与HuProt微阵列鉴定Matk为Ani潜在靶点
4. Ani直接与Matk相互作用并抑制其泛素介导的降解
为验证Matk与Ani之间是否存在直接相互作用,作者进行了多层次验证。分子对接结果显示,Ani可进入Matk结合口袋并与Glu220形成氢键(图5A);100 ns分子动力学模拟显示,Ani-Matk复合物在约10 ns后趋于稳定,氢键占有率、MM/GBSA能量分解和计算丙氨酸扫描进一步表明,Trp122、Ser197、Glu194及Met190等残基参与维持两者结合(图5B-F)。SPR实验测得Ani与纯化Matk的解离常数Kd为2.12×10-6 M(图5G);Ani-biotin pull-down可富集Matk,且过量未标记Ani能够竞争这一结合(图5H)。此外,CETSA结果则显示Ani可提高Matk的热稳定性(图5I)。计算模拟、纯化蛋白检测和细胞内靶标结合三类证据综合表明Matk是Ani的直接结合蛋白。
明确Ani可直接结合Matk后,作者研究了Ani进入脑微血管内皮细胞的方式及其对Matk蛋白水平的影响。Ani-biotin可被HCMEC/D3细胞摄取,而OCT2抑制剂西咪替丁或OCT2 siRNA处理均可降低其胞内信号,提示Ani至少部分依赖OCT2进入内皮细胞。蛋白质组学提示Matk在血栓+rtPA组下降而在Ani处理后恢复(图4A),在小鼠脑组织和OGD/R处理的HCMEC/D3细胞中用Western blot进一步验证了这一变化,免疫荧光结果也显示Ani可恢复细胞内Matk水平(图5J-L)。然而,各组Matk mRNA水平未发生明显变化,提示Ani对Matk的调控主要发生在转录后水平,而非通过转录水平调控实现。
基于上述结果,为明确Matk的降解途径,作者分别使用蛋白酶体抑制剂MG132和溶酶体抑制剂氯喹。结果显示,仅MG132能够阻止OGD/R诱导的Matk下降(图5M-N),说明Matk的减少主要与蛋白酶体降解相关。进一步的免疫沉淀结果显示,OGD/R增加Matk泛素化水平,而Ani处理显著抑制这一变化(图5O)。因此,Ani并不是通过提高Matk转录来增加其表达,而是直接结合Matk、减少其泛素化及蛋白酶体降解,从而维持Matk蛋白稳定性。
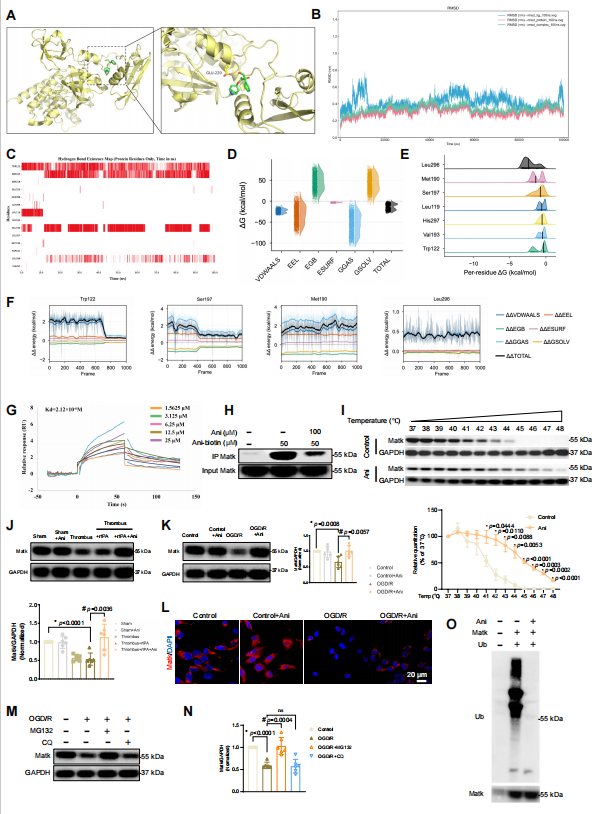
图5: Ani直接与Matk相互作用并抑制其泛素介导的降解
5. Matk通过调节Src信号介导Ani对HCMECs内皮屏障功能的保护
Matk是CSK家族酪氨酸激酶,已有研究表明Matk可通过促进Src Tyr530的磷酸化抑制Src激活,从而限制Src Tyr419磷酸化。相反,Src异常激活后可通过诱导VE-cadherin Tyr658磷酸化破坏细胞间黏附连接,并通过Caveolin-1 Tyr14磷酸化促进囊泡运输。因此,在确认Ani能够稳定Matk后,作者进一步探讨Matk-Src信号轴是否介导Ani对两类血管渗漏途径的同步调控。作者首先在HCMEC/D3细胞中建立OGD/R模型,评价Ani对内皮屏障功能的影响。结果显示,Ani处理可降低FITC-dextran通透性并提高跨内皮电阻(TEER)(图6A-B),提示Ani能够在细胞水平改善内皮屏障损伤。
检测相关信号分子发现,OGD/R导致Matk、p-Src Tyr530、VE-cadherin和ZO-1水平下降,同时促进p-Src Tyr419、p-VE-cadherin Tyr658及p-Caveolin-1 Tyr14升高;而Ani处理可逆转这些变化(图6C)。在小鼠脑组织中,同样观察到相同的VE-cadherin、Src和Caveolin-1信号变化(图6D),HCMEC/D3免疫荧光进一步证实Ani可降低p-Src Tyr419水平(图6E);此外,Src激酶活性检测则显示,Ani可抑制OGD/R细胞及rtPA溶栓脑组织中的Src活化。这些结果提示Ani可能通过恢复Matk对Src信号的负向调控,维持VE-cadherin和ZO-1介导的细胞间连接,同时抑制Caveolin-1介导的跨细胞囊泡运输,从而在同一信号轴上协调控制两类渗漏。
为进一步验证Matk是Ani发挥作用的必要节点,作者进行了Matk功能缺失和功能获得实验。siRNA敲低Matk后,Ani降低FITC-dextran通透性、提高TEER以及抑制Src、VE-cadherin和Caveolin-1异常磷酸化的作用均明显减弱(图6F-I),提示Matk参与Ani介导的屏障保护过程。相反,过表达Matk在无Ani处理的条件下即可改善内皮通透性和TEER水平,并诱导产生与Ani相似的Src及下游信号变化(图6J-M);同时,Matk过表达与Ani联合处理未产生进一步增强效应。
以上结果表明,Matk是Ani保护内皮屏障功能的重要介导因素;同时,提高Matk水平能够在细胞模型中部分复制Ani的保护效应。二者通过共同调控Matk-Src信号轴发挥作用。
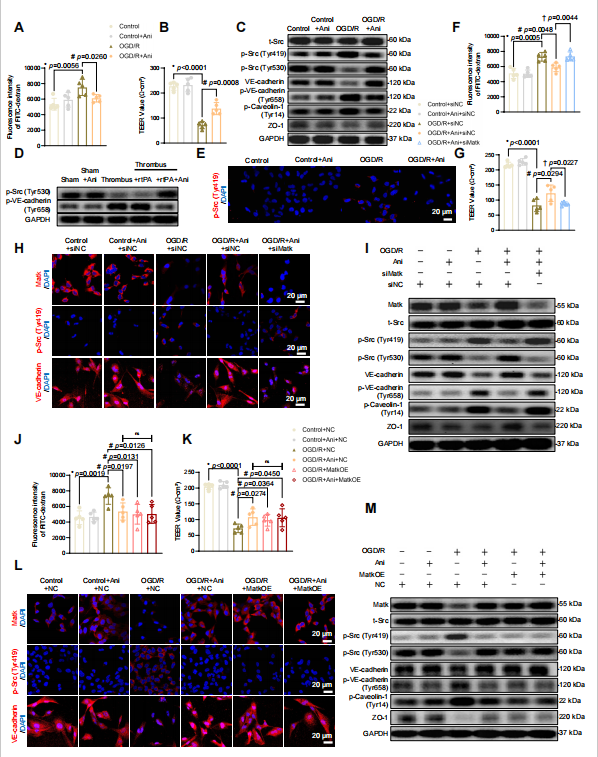
图6:Matk通过调节Src信号介导Ani对HCMECs内皮屏障功能的保护
6. 内皮细胞特异性调控Matk揭示其在Ani减轻rtPA溶栓诱导血管源性脑水肿中的必要性
细胞实验提示了Matk参与Ani对内皮屏障的保护作用,但血脑屏障依赖完整神经血管单元,因此需要在体内验证脑血管内皮Matk在Ani抗渗漏效应中的作用。作者利用AAV2/BI30-Tie1-miR30-shMatk在脑血管内皮细胞中敲低Matk。结果显示,在AAV-NC(对照组)小鼠中,Ani可明显降低延迟rtPA溶栓后的FITC-dextran和Evans blue外渗;而敲低Matk后,这一保护作用显著减弱(图7A-D),提示内皮Matk是Ani发挥体内血脑屏障保护作用的重要介质。
为明确这一表型是否与Matk-Src通路有关,作者从相关实验组分离脑内皮细胞进行Western blot检测。结果显示,Ani可提高Matk和抑制性p-Src Tyr530水平,并恢复VE-cadherin和ZO-1表达,同时降低活化型p-Src Tyr419以及p-VE-cadherin Tyr658和p-Caveolin-1 Tyr14;Matk敲低后,上述变化大多被逆转(图7E)。免疫荧光进一步显示,Matk敲低削弱了Ani对VE-cadherin连续分布的恢复作用,透射电镜则观察到内皮连接间隙和胞质囊泡异常的改善明显受损(图7F-I)。这些结果说明,内皮Matk不仅参与Ani对旁细胞连接的保护,也参与Ani对跨细胞囊泡运输的抑制。
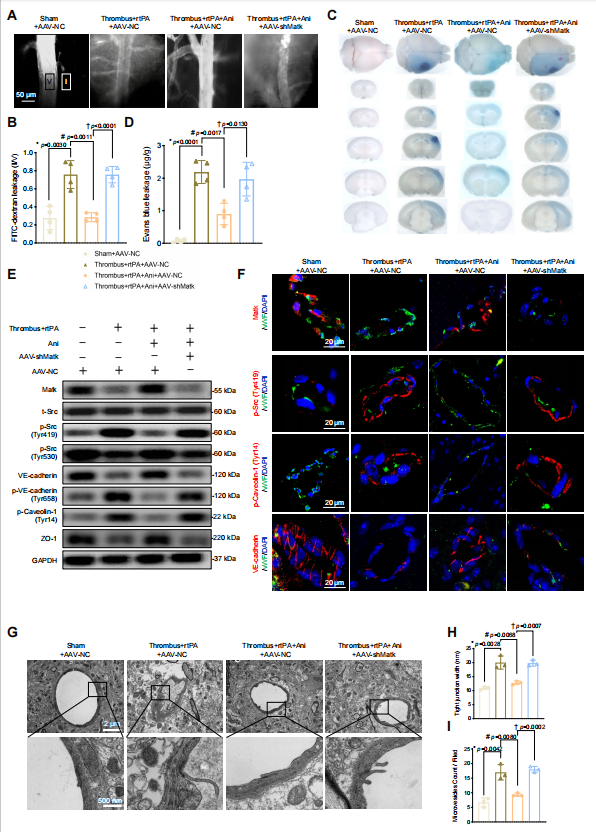
图7:内皮细胞特异性敲低Matk阻止Ani减轻缺血性卒中小鼠rtPA溶栓后微血管外渗
随后,作者使用AAV2/BI30-Tie1-Matk在脑血管内皮细胞中过表达Matk,以评估提高Matk是否能够复制Ani的保护效应。结果显示,与AAV-NC组相比,Matk过表达在不联合Ani的情况下即可降低FITC-dextran和Evans blue外渗(图8A-D),并伴随p-Src Tyr530升高、p-Src Tyr419及其下游p-VE-cadherin Tyr658和p-Caveolin-1 Tyr14下降,同时VE-cadherin和ZO-1水平得到恢复(图8E-F)。电镜结果进一步观察到,Matk过表达同样可缩小内皮连接间隙并减少囊泡数量,其改善程度与Ani处理相近,而二者联用后未见明显进一步增强(图8G-I)。
综合敲低与过表达实验结果表明,内皮Matk敲低可削弱Ani的血脑屏障保护效应,而提高Matk水平则能够复制Ani的主要作用,但二者联用未观察到明显叠加效应。两组结果共同支持Matk是Ani体内调控血脑屏障的重要节点,并将“Ani稳定Matk—抑制Src激活—改善旁细胞与跨细胞渗漏”的机制从细胞水平延伸至动物体内。
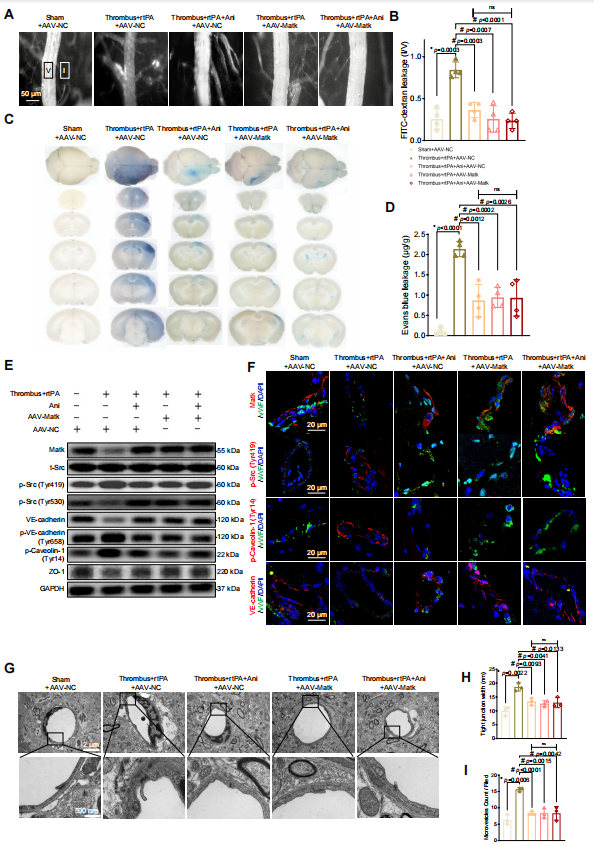
图8:内皮细胞特异性回补Matk表达减轻缺血性卒中小鼠rtPA溶栓后微血管外渗
综上所述,本研究发现Ani可通过靶向Matk调控Src信号通路,同时抑制旁细胞和跨细胞两条血管渗漏途径,从而保护血脑屏障并缓解延迟rtPA溶栓后的脑水肿。明确了Matk是调控溶栓后脑血管屏障稳定性的潜在靶点,为解决延迟溶栓治疗后血管源性脑水肿缺乏有效干预手段这一临床问题提供了新的研究方向,也为Ani作为rtPA辅助治疗策略的进一步开发提供了实验依据。
原文链接:https://www.nature.com/articles/s41467-026-73995-0




 8888